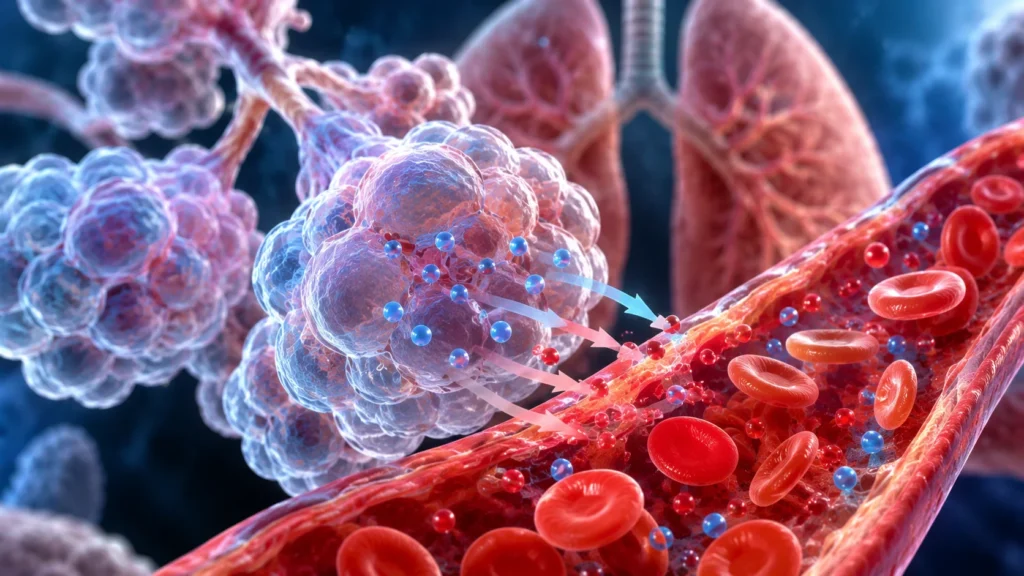

El transporte de oxígeno y dióxido de carbono es un proceso fisiológico indispensable para mantener el metabolismo celular, la producción de energía y el equilibrio ácido-base del organismo. Consiste en el desplazamiento de estos gases entre los pulmones, la sangre y los tejidos mediante mecanismos físicos y químicos que permiten incorporar oxígeno a la circulación y eliminar el dióxido de carbono generado durante el metabolismo celular. Ambos gases se transportan principalmente a través de la sangre, pero utilizan mecanismos diferentes debido a sus propiedades fisicoquímicas y a su comportamiento frente a la hemoglobina. El oxígeno se transporta fundamentalmente unido a la hemoglobina de los eritrocitos, mientras que el dióxido de carbono circula principalmente en forma de bicarbonato, además de una proporción disuelta en el plasma y otra unida a proteínas sanguíneas. La coordinación de estos mecanismos permite mantener una disponibilidad adecuada de oxígeno en los tejidos y evitar la acumulación excesiva de dióxido de carbono.
El transporte de oxígeno comienza cuando el aire inspirado alcanza los alvéolos pulmonares y establece un gradiente de presión parcial entre el espacio alveolar y la sangre venosa que llega a los capilares pulmonares. En condiciones habituales a nivel del mar, la presión parcial de oxígeno alveolar es aproximadamente de 100 mmHg, mientras que la sangre venosa mixta presenta una presión parcial cercana a 40 mmHg. Esta diferencia favorece la difusión del oxígeno a través de la membrana alveolocapilar hacia el plasma y posteriormente hacia el interior de los eritrocitos. Una vez dentro de estas células, el oxígeno se une de manera reversible a la hemoglobina, una proteína formada por cuatro subunidades, cada una de las cuales contiene un grupo hemo con un átomo de hierro en estado ferroso (Fe²⁺). Cada átomo de hierro puede unir una molécula de oxígeno, por lo que una molécula de hemoglobina puede transportar hasta cuatro moléculas de este gas. Esta capacidad de unión permite que la sangre transporte una cantidad de oxígeno considerablemente mayor que la que podría transportar únicamente mediante disolución en el plasma.
En condiciones fisiológicas, aproximadamente el 98-99 % del oxígeno transportado por la sangre se encuentra unido a la hemoglobina, mientras que alrededor del 1-2 % permanece físicamente disuelto en el plasma y en el líquido intracelular de los eritrocitos. Aunque esta fracción disuelta representa una proporción pequeña del contenido total, tiene una importancia fundamental porque determina la presión parcial de oxígeno sanguínea y constituye la forma de oxígeno que puede difundirse a través de las membranas biológicas. Por el contrario, la fracción unida a la hemoglobina representa la principal reserva circulante de oxígeno y permite suministrar cantidades suficientes a los tejidos. Por esta razón, la presión parcial de oxígeno y el contenido total de oxígeno en la sangre son variables diferentes: la primera refleja el oxígeno disuelto, mientras que el segundo incluye tanto el oxígeno disuelto como el unido a la hemoglobina.
La cantidad de oxígeno transportada por la sangre arterial puede expresarse mediante la siguiente ecuación:

Esta ecuación demuestra por qué la concentración de hemoglobina es uno de los principales determinantes del contenido arterial de oxígeno. Una persona puede presentar una presión parcial de oxígeno normal y, sin embargo, transportar una cantidad reducida de este gas cuando existe anemia, debido a la disminución de la hemoglobina disponible para unirlo. De igual manera, una reducción importante de la saturación de hemoglobina disminuye el contenido arterial de oxígeno y compromete su disponibilidad para los tejidos.
La unión del oxígeno a la hemoglobina presenta una propiedad denominada cooperatividad positiva, que significa que la unión de una molécula de oxígeno facilita la unión de las siguientes. Este comportamiento se debe a cambios conformacionales de la proteína que modifican progresivamente su afinidad por el oxígeno. La hemoglobina desoxigenada presenta predominantemente una conformación denominada estado T, caracterizada por una afinidad relativamente baja por el oxígeno. Cuando comienza a unirse el oxígeno, se favorece la transición hacia el estado R, que presenta una afinidad mayor. Este mecanismo explica la forma sigmoidea de la curva de disociación de la oxihemoglobina, la cual representa la relación entre la presión parcial de oxígeno y el porcentaje de saturación de la hemoglobina. La porción superior de la curva permite mantener una saturación elevada en los pulmones incluso cuando la presión parcial de oxígeno experimenta variaciones moderadas, mientras que su porción más pronunciada facilita la liberación de oxígeno en los tejidos cuando disminuye la presión parcial local.
La afinidad de la hemoglobina por el oxígeno también depende de las condiciones metabólicas del organismo. Cuando aumenta la concentración de dióxido de carbono, disminuye el pH, se incrementa la temperatura o aumenta la concentración de 2,3-bisfosfoglicerato, la curva de disociación de la oxihemoglobina se desplaza hacia la derecha. Este desplazamiento indica una disminución de la afinidad de la hemoglobina por el oxígeno y facilita su liberación hacia los tejidos. Por el contrario, cuando disminuyen la temperatura, la concentración de dióxido de carbono y la concentración de hidrogeniones, o aumenta el pH, la curva se desplaza hacia la izquierda, lo que incrementa la afinidad de la hemoglobina y favorece la unión del oxígeno. Estos cambios permiten adaptar el transporte de oxígeno a las necesidades metabólicas de los diferentes órganos.
Un mecanismo especialmente importante es el efecto Bohr, que describe cómo el aumento de la presión parcial de dióxido de carbono y de la concentración de hidrogeniones disminuye la afinidad de la hemoglobina por el oxígeno. En los tejidos metabólicamente activos se produce una mayor cantidad de dióxido de carbono y de ácidos, lo que favorece la liberación de oxígeno desde la hemoglobina. Esto ocurre porque los hidrogeniones interactúan con determinados grupos de la proteína y estabilizan su conformación desoxigenada, reduciendo su afinidad por el oxígeno. De esta manera, el efecto Bohr establece una relación directa entre la actividad metabólica de los tejidos y la disponibilidad local de oxígeno, ya que los órganos que producen más dióxido de carbono y presentan mayor actividad metabólica reciben una mayor liberación de este gas.
Una vez que el oxígeno se libera de la hemoglobina, difunde desde los capilares sistémicos hacia el líquido intersticial y posteriormente ingresa en las células, siguiendo su gradiente de presión parcial. En el interior celular, el oxígeno alcanza las mitocondrias, donde participa como aceptor final de electrones en la cadena de transporte electrónico. Su reducción permite la formación de agua y contribuye a mantener el funcionamiento de la fosforilación oxidativa, proceso mediante el cual se sintetiza ATP. Por consiguiente, el transporte sanguíneo de oxígeno no constituye únicamente un mecanismo de distribución de un gas, sino que representa una condición esencial para mantener la producción aeróbica de energía y la actividad metabólica celular.
El transporte de dióxido de carbono comienza en los tejidos, donde este gas se produce continuamente como consecuencia de las reacciones metabólicas, especialmente durante la descarboxilación del piruvato y el funcionamiento del ciclo de los ácidos tricarboxílicos. Debido a que las células generan dióxido de carbono y mantienen una presión parcial superior a la de la sangre arterial que llega a los capilares sistémicos, el gas difunde desde el interior celular hacia el líquido intersticial y posteriormente ingresa en la sangre. Una vez en la circulación, el dióxido de carbono utiliza tres mecanismos principales de transporte: disuelto en el plasma, unido a proteínas mediante la formación de compuestos carbamino y convertido en bicarbonato. La distribución aproximada en condiciones fisiológicas corresponde a un 5-10 % disuelto, un 20-30 % unido a proteínas y un 60-70 % transportado en forma de bicarbonato. Estas proporciones son aproximadas y pueden variar según las condiciones fisiológicas y la forma de expresar el contenido de dióxido de carbono sanguíneo.
Una pequeña proporción del dióxido de carbono se transporta físicamente disuelta en el plasma y en el interior de los eritrocitos. Esta fracción es importante porque determina la presión parcial de dióxido de carbono de la sangre y permite establecer el gradiente necesario para su difusión entre los tejidos, la sangre y los alvéolos. A diferencia del oxígeno, el dióxido de carbono presenta una solubilidad considerablemente mayor en los líquidos biológicos, por lo que puede difundirse con mayor facilidad a través de las membranas celulares y de la barrera alveolocapilar. Sin embargo, su transporte exclusivamente disuelto sería insuficiente para eliminar toda la cantidad producida por el metabolismo celular, por lo que necesita transformarse químicamente y asociarse con componentes de la sangre.
Otra parte del dióxido de carbono se transporta unida a las proteínas sanguíneas, principalmente a la hemoglobina, mediante la formación de compuestos denominados carbaminohemoglobina. Esta unión ocurre entre el dióxido de carbono y los grupos amino terminales de las cadenas globínicas, sin involucrar directamente el hierro del grupo hemo. Por tanto, debe distinguirse de la unión del oxígeno, que ocurre en el hierro ferroso de los grupos hemo. La formación de carbaminohemoglobina es favorecida por la hemoglobina desoxigenada, que posee una mayor capacidad para unir dióxido de carbono y protones. Este mecanismo contribuye al transporte de dióxido de carbono desde los tejidos hacia los pulmones y participa en la regulación del equilibrio ácido-base.
El mecanismo cuantitativamente más importante para transportar dióxido de carbono es su conversión en bicarbonato. Cuando el dióxido de carbono ingresa en los eritrocitos, reacciona con el agua mediante una reacción catalizada por la enzima anhidrasa carbónica, que acelera considerablemente la velocidad de transformación. Esta reacción produce ácido carbónico, el cual se disocia rápidamente en hidrogeniones y bicarbonato:

El bicarbonato generado sale del eritrocito hacia el plasma mediante un intercambiador de aniones denominado AE1, que introduce simultáneamente iones cloruro en la célula. Este intercambio se conoce como desplazamiento del cloruro o fenómeno de Hamburger. Su función consiste en mantener la electroneutralidad celular mientras permite que una proporción considerable del dióxido de carbono sea transportada en el plasma en forma de bicarbonato. Los hidrogeniones producidos durante la reacción son amortiguados principalmente por la hemoglobina desoxigenada, que posee una capacidad importante para captar protones y limitar los cambios del pH intracelular. De esta manera, la sangre puede transportar grandes cantidades de dióxido de carbono sin experimentar modificaciones excesivas de su equilibrio ácido-base.
El proceso se invierte cuando la sangre alcanza los capilares pulmonares. La presión parcial de dióxido de carbono en la sangre venosa es superior a la presión parcial del gas en los alvéolos, por lo que el dióxido de carbono disuelto difunde desde la sangre hacia el espacio alveolar. Al mismo tiempo, el bicarbonato plasmático vuelve a ingresar en los eritrocitos mediante el intercambiador AE1, mientras que los iones cloruro salen de estas células. Los hidrogeniones se combinan con el bicarbonato para formar ácido carbónico, que posteriormente se transforma en dióxido de carbono y agua mediante la acción de la anhidrasa carbónica. El dióxido de carbono producido difunde hacia los alvéolos y es eliminado durante la espiración. Este mecanismo permite recuperar el equilibrio químico de la sangre y eliminar continuamente el producto gaseoso del metabolismo celular.
La relación entre el transporte de oxígeno y el transporte de dióxido de carbono también depende del efecto Haldane, que describe cómo la oxigenación de la hemoglobina en los pulmones disminuye su capacidad para transportar dióxido de carbono y protones. Cuando el oxígeno se une a la hemoglobina, esta modifica su conformación y disminuye su afinidad por los hidrogeniones y por el dióxido de carbono unido a los grupos amino terminales. Como consecuencia, se favorece la liberación de protones y dióxido de carbono, lo que facilita su eliminación pulmonar. En los tejidos ocurre el fenómeno contrario: cuando la hemoglobina libera oxígeno, aumenta su capacidad para captar protones y transportar dióxido de carbono. El efecto Haldane y el efecto Bohr son mecanismos complementarios que permiten coordinar la captación de oxígeno y la eliminación de dióxido de carbono en los pulmones, así como la liberación de oxígeno y la captación de dióxido de carbono en los tejidos.
El transporte de dióxido de carbono también es fundamental para mantener el equilibrio ácido-base. La reacción reversible entre dióxido de carbono, agua, hidrogeniones y bicarbonato constituye uno de los principales sistemas reguladores del pH sanguíneo. Cuando aumenta la producción metabólica de dióxido de carbono o disminuye su eliminación pulmonar, aumenta la presión parcial de este gas en la sangre y se favorece la formación de hidrogeniones, lo que puede disminuir el pH y producir acidosis respiratoria. Por el contrario, cuando la ventilación alveolar elimina dióxido de carbono en exceso, disminuye su presión parcial sanguínea y se reduce la concentración de hidrogeniones, favoreciendo el aumento del pH y la aparición de alcalosis respiratoria. Por esta razón, la regulación de la ventilación pulmonar constituye un mecanismo esencial para controlar la concentración de dióxido de carbono y contribuir a la estabilidad del medio interno.
La cantidad de dióxido de carbono transportada por la sangre depende de su presión parcial, de su solubilidad, de la capacidad amortiguadora de la hemoglobina y de la disponibilidad de bicarbonato. La relación entre el contenido total de dióxido de carbono y su presión parcial se representa mediante la curva de disociación del dióxido de carbono. A diferencia de la curva de disociación de la oxihemoglobina, esta presenta una relación relativamente más lineal dentro del intervalo fisiológico. Además, la oxigenación de la hemoglobina modifica la cantidad de dióxido de carbono que puede transportar la sangre para una misma presión parcial. En consecuencia, la sangre desoxigenada puede contener más dióxido de carbono que la sangre oxigenada cuando ambas se encuentran a una presión parcial equivalente, lo que constituye una manifestación del efecto Haldane.
El transporte de oxígeno y dióxido de carbono representa un sistema integrado que conecta la función respiratoria con el metabolismo celular. El oxígeno ingresa en la sangre desde los alvéolos, se transporta principalmente unido a la hemoglobina y se libera en los tejidos para participar en la producción aeróbica de ATP. Por su parte, el dióxido de carbono generado por el metabolismo celular ingresa en la circulación y se transporta principalmente como bicarbonato, aunque también circula disuelto y unido a proteínas sanguíneas. En los pulmones, ambos procesos se invierten: la hemoglobina capta oxígeno y libera dióxido de carbono, que posteriormente se elimina mediante la espiración. La regulación coordinada de estos mecanismos permite conservar una adecuada oxigenación tisular, facilitar la eliminación de los productos metabólicos y mantener la estabilidad del pH sanguíneo.
Fuente y lecturas recomendadas:
1 Mairbäurl, H., & Weber, R. E. (2012). Oxygen transport by hemoglobin. Comprehensive Physiology, 2(2), 1463–1489. https://doi.org/10.1002/cphy.c080113
2 Jensen, F. B. (2004). Red blood cell pH, the Bohr effect, and other oxygenation-linked phenomena in blood O₂ and CO₂ transport. Acta Physiologica Scandinavica, 182(3), 215–227. https://doi.org/10.1111/j.1365-201X.2004.01361.x
3 Rhodes, C. E., Denault, D., & Varacallo, M. A. (2022). Physiology, oxygen transport. StatPearls. StatPearls Publishing.
4 Tyuma, I. (1984). The Bohr effect and the Haldane effect in human hemoglobin. Japanese Journal of Physiology, 34(2), 205–216. https://doi.org/10.2170/jjphysiol.34.205
5 Geers, C., & Gros, G. (2000). Carbon dioxide transport and carbonic anhydrase in blood and muscle. Physiological Reviews, 80(2), 681–715. https://doi.org/10.1152/physrev.2000.80.2.681
6 Malte, H., & Lykkeboe, G. (2018). The Bohr/Haldane effect: A model-based uncovering of the full extent of its impact on O₂ delivery to and CO₂ removal from tissues. Journal of Applied Physiology, 125(3), 916–922. https://doi.org/10.1152/japplphysiol.00140.2018
7 Doyle, J., & Cooper, J. S. (2023). Physiology, carbon dioxide transport. StatPearls. StatPearls Publishing.
Síguenos en X: @el_homomedicus y @enarm_intensivo Síguenos en instagram: homomedicus y en Treads.net como: HomomedicusAprende administración paso a paso
ADMINISTRACION DESDE CERO