
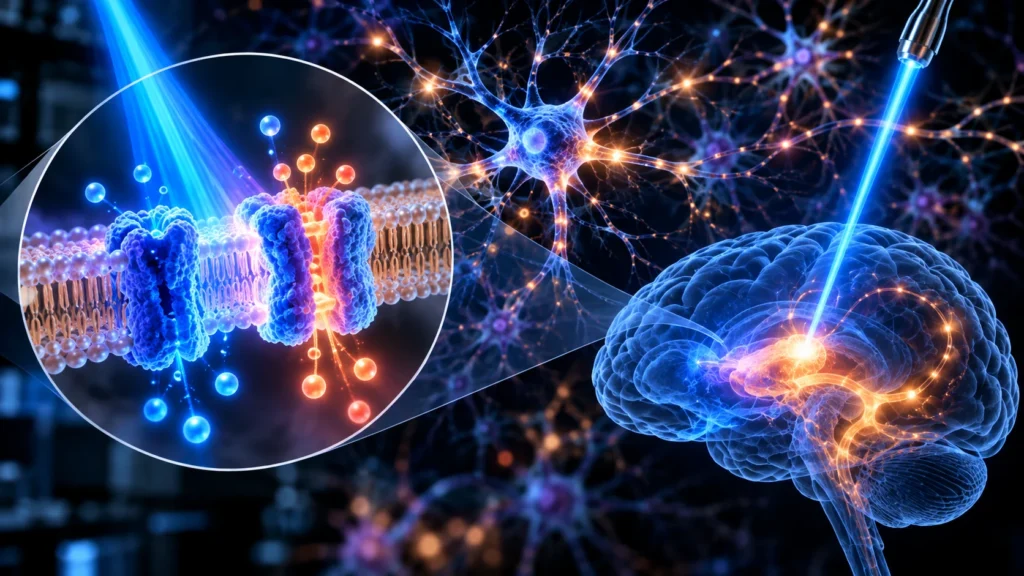

La optogenética es una estrategia experimental de bioingeniería que combina la modificación genética de células con el empleo de proteínas sensibles a la luz para controlar o registrar procesos celulares con una precisión temporal y espacial extraordinariamente elevada. Su importancia fundamental reside en que permite pasar de una observación correlacional a una manipulación causal: en lugar de limitarse a observar que una población celular se activa durante una conducta, puede inducirse o inhibirse selectivamente su actividad y determinar si esa actividad es necesaria o suficiente para producir el fenómeno estudiado. Esta capacidad ha transformado especialmente la neurociencia de circuitos, aunque actualmente se aplica también en biología celular, cardiología, endocrinología, inmunología y otras áreas biomédicas.
1. ¿Qué significa exactamente el término optogenética?
El término combina dos conceptos. El componente opto hace referencia al empleo de luz como estímulo físico para activar o inhibir una proteína determinada; el componente genética indica que la sensibilidad a la luz se introduce en las células mediante información genética que codifica la proteína fotosensible. De esta manera, una célula que normalmente no responde directamente a la iluminación puede adquirir una función fotosensible después de expresar artificialmente una proteína adecuada.
La característica que distingue a la optogenética de una simple estimulación luminosa es, por tanto, que la luz no constituye por sí misma el elemento selectivo. La selectividad procede de la expresión de la proteína fotosensible en determinadas células, mientras que la luz proporciona el control temporal sobre esas células. Esta separación entre especificidad biológica y control físico permite seleccionar poblaciones celulares definidas mediante promotores, potenciadores, sistemas de recombinación genética, vectores virales o estrategias de direccionamiento anatómico.
En términos funcionales, un experimento optogenético suele responder a cuatro preguntas consecutivas: qué células deben modificarse, qué proteína fotosensible debe expresarse, dónde debe aplicarse la luz y qué consecuencia fisiológica se desea producir o medir. La elección de cada componente modifica de manera importante el resultado experimental, por lo que la optogenética no debe considerarse una única técnica, sino una familia de herramientas moleculares, genéticas y ópticas.
2. El fundamento molecular
La mayoría de las herramientas optogenéticas clásicas se basan en opsinas microbianas, proteínas integrales de membrana que contienen un cromóforo denominado retinal. Las opsinas microbianas presentan generalmente una arquitectura de siete hélices transmembrana y utilizan la absorción de un fotón para desencadenar cambios conformacionales que modifican el transporte de iones o activan determinadas funciones moleculares.
El retinal se encuentra unido covalentemente a un residuo de lisina de la proteína mediante una base de Schiff. Cuando absorbe un fotón de la longitud de onda apropiada, cambia su configuración molecular y desencadena el ciclo fotoquímico de la opsina. Este proceso modifica la estructura de la proteína y puede producir la apertura de un canal iónico, el bombeo activo de iones o, en determinadas proteínas diseñadas, la regulación de procesos bioquímicos intracelulares.
Este mecanismo explica por qué las opsinas resultan particularmente útiles para la neurociencia. Una proteína puede convertir directamente un estímulo luminoso en un cambio del potencial de membrana. La luz, por tanto, se transforma en una modificación bioeléctrica de la célula sin necesidad de una cascada sináptica externa.
3. El descubrimiento de Channelrhodopsin-2
Uno de los acontecimientos decisivos para el desarrollo de la optogenética moderna fue la caracterización de Channelrhodopsin-2, una proteína procedente del alga verde Chlamydomonas reinhardtii. En 2003 se demostró que esta proteína constituía un canal catiónico directamente activado por la luz. La absorción de luz producía una corriente de entrada de cationes y la proteína podía expresarse funcionalmente en células heterólogas.
Este descubrimiento fue particularmente importante porque Channelrhodopsin-2 reunía dos propiedades que anteriormente resultaban difíciles de obtener simultáneamente: control genético de la población celular y velocidad de respuesta compatible con la dinámica eléctrica de las neuronas.
En 2005 se demostró que la expresión de Channelrhodopsin-2 en neuronas de mamífero permitía controlar la actividad neuronal con resolución temporal del orden de milisegundos. La iluminación podía inducir potenciales de acción y modificar la transmisión sináptica, demostrando que una proteína fotosensible podía convertir una célula neuronal genéticamente seleccionada en un elemento controlable mediante pulsos luminosos.
Ese experimento constituye uno de los puntos fundacionales de la optogenética moderna porque estableció la posibilidad de controlar una población neuronal definida genéticamente, con precisión temporal suficiente para intervenir sobre eventos eléctricos individuales.
4. ¿Cómo se activa una neurona mediante optogenética?
Una neurona convencional mantiene una diferencia de potencial entre el interior y el exterior de su membrana. La entrada de determinados cationes puede despolarizar la membrana y llevarla hacia el umbral necesario para generar un potencial de acción.
Si una neurona expresa Channelrhodopsin-2, la iluminación con una longitud de onda adecuada abre el canal. Los cationes atraviesan la membrana siguiendo sus gradientes electroquímicos, produciendo una corriente que desplaza el potencial de membrana hacia valores más positivos. Cuando la despolarización alcanza el umbral correspondiente, puede desencadenarse un potencial de acción.
El proceso puede representarse conceptualmente así:
luz → absorción por retinal → cambio conformacional de la opsina → apertura del canal → flujo iónico → modificación del potencial de membrana → potencial de acción → respuesta fisiológica
Esta cadena explica una de las ventajas centrales de la optogenética: cada etapa puede asociarse a una variable experimental concreta y el investigador puede controlar el estímulo luminoso con gran precisión temporal.
5. Activación e inhibición: no todas las opsinas hacen lo mismo
Las herramientas optogenéticas pueden dividirse, de manera simplificada, en excitadoras, inhibidoras y moduladoras.
Las opsinas excitadoras permiten aumentar la excitabilidad celular. Las channelrhodopsins catiónicas constituyen el ejemplo clásico: la iluminación favorece una corriente catiónica que generalmente despolariza la membrana y puede inducir actividad eléctrica.
Las opsinas inhibidoras producen el efecto contrario. Algunas funcionan como bombas de protones y expulsan protones de la célula, mientras que otras permiten el transporte de aniones, incluido el cloruro, modificando el estado eléctrico de la membrana y reduciendo la probabilidad de generación de potenciales de acción.
Esta posibilidad de obtener excitación o inhibición mediante herramientas genéticamente direccionables es crucial. Permite formular experimentos causales en los que se pregunta qué sucede cuando una determinada población neuronal se activa, qué sucede cuando se silencia y si ambas manipulaciones producen efectos opuestos o diferentes.
6. Principales familias de proteínas optogenéticas
La familia de herramientas ha evolucionado considerablemente desde Channelrhodopsin-2. Las opsinas actuales pueden modificarse mediante mutagénesis, ingeniería racional, quimerización y evolución dirigida para cambiar su sensibilidad espectral, velocidad de activación y desactivación, conductancia, selectividad iónica, sensibilidad a la luz y localización celular.
Channelrhodopsins
Son canales iónicos activados por luz. Las variantes catiónicas se utilizan principalmente para excitación celular, mientras que determinadas channelrhodopsins aniónicas permiten inhibición. La ingeniería de estas proteínas ha producido variantes con diferentes velocidades y sensibilidades, lo que permite seleccionar herramientas adaptadas a distintos experimentos.
Bombas de protones
Las bombas de protones activadas por luz pueden disminuir la excitabilidad neuronal mediante el transporte de protones hacia el exterior de la célula. Estas herramientas fueron importantes para demostrar que la inhibición neuronal podía conseguirse mediante proteínas fotosensibles genéticamente direccionadas.
Bombas de cloruro
Las bombas de cloruro introducen cloruro en la célula y pueden favorecer la inhibición de la actividad neuronal. La utilidad experimental depende de las propiedades electroquímicas de la célula y de la concentración intracelular de cloruro, por lo que la interpretación fisiológica requiere considerar cuidadosamente el contexto celular.
Opsinas modificadas
La ingeniería molecular ha permitido generar proteínas con mayor sensibilidad, diferentes longitudes de onda de activación y cinéticas más rápidas o más lentas. Estas modificaciones son importantes porque una opsina muy sensible puede reducir la potencia luminosa necesaria, mientras que una opsina con cinética rápida puede reproducir con mayor fidelidad patrones temporales de actividad neuronal.
7. La longitud de onda es fundamental
No todas las opsinas responden a la misma luz. Existen proteínas sensibles a diferentes regiones del espectro, desde longitudes de onda relativamente cortas hasta variantes desplazadas hacia el rojo y el infrarrojo cercano.
Esto no constituye solamente una cuestión técnica. La longitud de onda determina cuánto se dispersa y absorbe la luz en el tejido biológico. La luz azul, por ejemplo, presenta una penetración limitada en tejidos profundos debido a la dispersión y absorción, mientras que las longitudes de onda más largas pueden resultar más favorables para alcanzar estructuras situadas a mayor profundidad.
Por esta razón se han desarrollado opsinas desplazadas hacia el rojo. El objetivo es conseguir activación eficaz con longitudes de onda que permitan una mejor penetración tisular y potencialmente reduzcan algunas limitaciones asociadas con la iluminación de tejidos profundos.
8. ¿Cómo se consigue que solamente determinadas células expresen la opsina?
La especificidad celular constituye uno de los elementos más importantes de la optogenética. Introducir una opsina en todo el tejido destruiría buena parte de la ventaja experimental, porque la iluminación afectaría simultáneamente a numerosas poblaciones celulares.
Para evitarlo pueden utilizarse promotores específicos de determinados tipos celulares, elementos reguladores de la expresión genética, sistemas de recombinación y diferentes estrategias de direccionamiento viral. En animales transgénicos también pueden emplearse sistemas genéticos que restringen la expresión de la opsina a determinadas poblaciones neuronales.
Otra estrategia consiste en utilizar vectores virales, especialmente vectores derivados de virus adenoasociados, para introducir el material genético en regiones específicas. El vector puede diseñarse de manera que la expresión dependa de determinados promotores o sistemas genéticos, aumentando la selectividad de la expresión.
Por tanto, la especificidad final de un experimento depende de la interacción entre vector, promotor, vía de administración, región anatómica, tipo celular, nivel de expresión y localización subcelular de la opsina. Cambiar cualquiera de estos elementos puede modificar considerablemente el resultado.
9. El otro componente esencial: llevar la luz hasta la célula
Una vez que las células expresan la opsina, todavía es necesario llevar fotones hasta ellas. En experimentos con estructuras profundas del sistema nervioso suelen emplearse fibras ópticas implantadas, microdiodos emisores de luz u otros dispositivos miniaturizados.
La fibra óptica permite transportar la luz desde una fuente externa hasta una región concreta del tejido. El investigador puede controlar la intensidad, duración, frecuencia y patrón espacial de los pulsos luminosos. Así, una determinada población celular puede recibir estímulos breves, trenes de pulsos o patrones temporales complejos.
El sistema completo puede entenderse como:
gen → opsina → célula seleccionada → luz → cambio bioeléctrico → circuito neuronal → conducta o función fisiológica
Esta cadena es precisamente lo que convierte a la optogenética en una herramienta de investigación causal.
10. ¿Por qué es tan importante la precisión temporal?
Las neuronas procesan información en escalas temporales extremadamente rápidas. Un potencial de acción dura aproximadamente milisegundos y la transmisión sináptica ocurre en escalas igualmente breves. Una herramienta que solamente pudiera modificar la actividad neuronal durante segundos o minutos sería insuficiente para reproducir o analizar muchos de los mecanismos temporales del sistema nervioso.
Channelrhodopsin-2 permitió precisamente alcanzar este régimen temporal. El estudio fundacional de 2005 mostró que podían generarse patrones de actividad neuronal controlados mediante pulsos luminosos con resolución de milisegundos.
Esto permite comparar patrones temporales diferentes. No es equivalente estimular una neurona durante un segundo de manera continua que producir pulsos breves separados por intervalos definidos. La frecuencia, duración, amplitud y estructura temporal de la estimulación pueden modificar la respuesta del circuito.
11. Precisión espacial
La segunda gran ventaja es la posibilidad de controlar células espacialmente definidas. La especificidad genética determina qué células son sensibles a la luz, mientras que el sistema óptico determina dónde llega la luz. La combinación de ambas dimensiones genera una selectividad que no suele conseguirse mediante estimulación eléctrica convencional.
La estimulación eléctrica puede activar simultáneamente diferentes tipos celulares cercanos debido a la distribución del campo eléctrico. La optogenética, en cambio, puede restringir la sensibilidad a una población determinada mediante la expresión selectiva de la opsina.
Esta característica permite, por ejemplo, estudiar separadamente neuronas excitadoras, interneuronas inhibitorias o neuronas que proyectan hacia una región anatómica concreta. También permite diferenciar células que están físicamente próximas pero que desempeñan funciones fisiológicas distintas.
12. Optogenética y causalidad
Una de las contribuciones conceptuales más importantes de la optogenética es que permite estudiar causalidad.
Supongamos que durante una conducta determinada se observa activación de una población neuronal. Esa observación por sí sola establece una correlación, pero no demuestra que las neuronas sean responsables de la conducta. Mediante optogenética puede activarse experimentalmente esa población y observar si aparece la conducta. También puede inhibirse durante la conducta y determinar si esta desaparece o se modifica.
Esto permite distinguir entre tres posibilidades: una población puede ser necesaria, suficiente, o simplemente estar correlacionada con determinado fenómeno. La capacidad de intervenir directamente sobre el circuito constituye una de las razones por las que la optogenética ha tenido un impacto tan grande en la neurociencia de sistemas.
13. Aplicaciones en neurociencia
La optogenética se ha utilizado para investigar circuitos relacionados con percepción sensorial, movimiento, recompensa, motivación, aprendizaje, memoria, miedo, ansiedad, alimentación, dolor, sueño y comportamiento social. También ha permitido analizar circuitos implicados en modelos experimentales de enfermedades neurológicas y psiquiátricas.
Uno de los ejemplos clásicos fue el estudio de circuitos relacionados con el sueño y la vigilia. La manipulación optogenética de poblaciones neuronales específicas permitió determinar si la actividad de determinadas células era suficiente para inducir estados conductuales concretos.
También se ha utilizado para estudiar las conexiones entre diferentes regiones cerebrales. Una ventaja importante es que pueden estimularse selectivamente terminales axónicas procedentes de una determinada población y, de esta manera, analizar la función de una conexión específica en lugar de activar indiscriminadamente todas las células de una región anatómica.
14. Optogenética y enfermedad de Parkinson
En modelos experimentales de enfermedad de Parkinson, la optogenética ha permitido analizar de manera causal cómo diferentes componentes de los circuitos de los ganglios basales contribuyen a las alteraciones motoras. Esta aproximación ha ayudado a distinguir los efectos de poblaciones celulares específicas y de sus conexiones, algo particularmente difícil mediante métodos farmacológicos o estimulación eléctrica convencional.
La importancia de estos experimentos no consiste necesariamente en que la optogenética vaya a sustituir directamente a los tratamientos actuales. Una de sus funciones más relevantes es revelar qué células y qué conexiones deberían convertirse en objetivos terapéuticos. De esta manera, la optogenética puede funcionar como una herramienta de descubrimiento que posteriormente orienta el desarrollo de terapias farmacológicas, eléctricas, génicas o celulares.
15. Optogenética y epilepsia
La epilepsia constituye otro campo importante porque implica alteraciones de la excitabilidad y de la dinámica de redes neuronales. La capacidad de activar o inhibir poblaciones específicas permite estudiar qué componentes del circuito participan en la iniciación, propagación y terminación de las descargas epilépticas.
Una ventaja particular consiste en que pueden analizarse diferentes tipos de neuronas inhibitorias y excitadoras por separado. Esto permite investigar si determinadas poblaciones pueden interrumpir experimentalmente la propagación de una actividad patológica sin producir una inhibición generalizada de todo el circuito.
16. Optogenética y visión
Uno de los avances translacionales más llamativos se ha producido en la retina. En enfermedades degenerativas como la retinitis pigmentosa, la pérdida de fotorreceptores puede dejar relativamente preservadas determinadas neuronas internas de la retina. La estrategia optogenética consiste en introducir una opsina en células supervivientes para convertirlas artificialmente en células capaces de responder a la luz.
En 2021 se publicó el primer caso clínico de recuperación funcional parcial de visión mediante una estrategia optogenética. Se administró un vector adenoasociado que expresaba la opsina ChrimsonR en la retina de una persona con ceguera por retinitis pigmentosa y se utilizó un sistema de gafas que detectaba cambios de intensidad luminosa y proyectaba patrones de luz sobre la retina. El paciente pudo detectar, localizar, contar y tocar objetos bajo determinadas condiciones experimentales, y las pruebas electroencefalográficas mostraron actividad relacionada con los objetos en la corteza visual.
Este resultado es extraordinariamente importante, pero debe interpretarse con precisión. No significa que la visión normal haya sido restaurada ni que la optogenética constituya actualmente un tratamiento universal para la ceguera. El resultado demostró una recuperación funcional parcial bajo condiciones específicas, dependiente además de un dispositivo óptico externo.
Investigaciones posteriores han continuado intentando mejorar la calidad de la visión mediante opsinas con propiedades espectrales y cinéticas más adecuadas, mejores vectores y estrategias de direccionamiento hacia células retinianas capaces de conservar mayor parte del procesamiento visual. En 2025 se comunicó un estudio clínico inicial con una opsina sintética administrada a cuatro personas con degeneración retiniana grave, en el que se describieron mejoras en visión, discriminación de formas y movilidad durante el seguimiento informado.
17. Optogenética cardíaca
El corazón también puede modificarse mediante herramientas optogenéticas porque su función depende de fenómenos bioeléctricos. La expresión de proteínas fotosensibles en cardiomiocitos permite modificar experimentalmente el potencial de membrana y estudiar fenómenos como estimulación cardíaca, sincronización, cardioversión y arritmias.
En este contexto, la finalidad experimental es especialmente interesante porque la luz puede actuar sobre poblaciones celulares específicas y permitir estudiar cómo se propagan las ondas eléctricas por el tejido cardíaco. Sin embargo, la traducción clínica requiere resolver problemas de penetración de luz, distribución genética, seguridad y control de grandes volúmenes tisulares.
18. Optogenética fuera de la neurociencia
La definición moderna de optogenética no se limita al control de potenciales de acción. También incluye proteínas diseñadas para utilizar la luz como interruptor de procesos bioquímicos intracelulares. Mediante proteínas fotosensibles pueden regularse interacciones entre proteínas, localización subcelular, actividad enzimática, señalización intracelular y expresión génica.
Esta extensión es conceptualmente importante porque transforma la luz en una herramienta para manipular circuitos moleculares, no solamente circuitos neuronales. Una proteína puede diseñarse para permanecer inactiva en ausencia de luz y adquirir una determinada conformación o interacción después de la iluminación.
Por ello, la optogenética puede entenderse actualmente como una plataforma de control espacio-temporal de procesos biológicos mediante proteínas fotosensibles codificadas genéticamente. La neurociencia fue el campo que impulsó su desarrollo, pero el principio puede aplicarse a prácticamente cualquier proceso celular susceptible de ser conectado molecularmente con una señal luminosa.
19. Optogenética como sistema de control y registro simultáneo
La evolución tecnológica ha permitido combinar la optogenética con técnicas de registro neuronal. Es posible, por ejemplo, activar determinadas neuronas mediante una opsina mientras se registran simultáneamente sus efectos mediante electrofisiología o mediante indicadores fluorescentes de actividad.
Los indicadores genéticamente codificados pueden detectar calcio, voltaje, neurotransmisores u otras variables fisiológicas. Los indicadores de calcio suelen proporcionar señales robustas para estudiar actividad neuronal a gran escala, mientras que los indicadores de voltaje pueden proporcionar información temporal más directamente relacionada con las variaciones del potencial de membrana.
Esto permite construir experimentos de tipo perturbación-observación: se modifica una población mediante luz y simultáneamente se observa cómo responde el resto del circuito. La combinación puede proporcionar información mucho más completa que cualquiera de las dos estrategias utilizadas de forma aislada.
20. ¿Qué diferencia existe entre un actuador y un indicador optogenético?
Un actuador convierte la luz en una modificación funcional de la célula. Una channelrhodopsin es un ejemplo: la luz modifica la conductancia de la membrana y puede producir excitación.
Un indicador, por el contrario, convierte un fenómeno biológico en una señal óptica. Un indicador de calcio puede aumentar o disminuir su fluorescencia cuando cambia la concentración intracelular de calcio; un indicador de voltaje puede cambiar su señal óptica en función del potencial de membrana.
Esta distinción es fundamental porque permite construir sistemas de control y lectura simultáneos. El actuador modifica el sistema y el indicador informa sobre lo que ocurre como consecuencia de esa modificación.
21. Principales ventajas
La primera ventaja es la precisión temporal. Las opsinas pueden responder en escalas compatibles con la actividad eléctrica neuronal, lo que permite estudiar fenómenos que ocurren en milisegundos.
La segunda es la especificidad celular. La expresión genética puede restringirse a determinadas poblaciones celulares, permitiendo distinguir células que comparten una región anatómica pero poseen funciones diferentes.
La tercera es la reversibilidad. En muchos sistemas, retirar la iluminación hace que la proteína regrese a su estado funcional basal después de un intervalo determinado. Esto permite alternar periodos de activación y recuperación dentro del mismo experimento.
La cuarta es la posibilidad de combinar la manipulación con registro simultáneo mediante electrofisiología, microscopía, indicadores de calcio, indicadores de voltaje y otras técnicas.
La quinta es la capacidad para investigar causalidad, una característica especialmente valiosa cuando se estudian circuitos complejos en los que las correlaciones entre actividad y conducta son insuficientes para establecer mecanismos.
22. Limitaciones fundamentales
La optogenética no es una técnica perfecta y sus resultados pueden interpretarse incorrectamente si no se controlan sus artefactos.
Uno de los principales problemas es el calentamiento del tejido. La absorción de luz puede aumentar la temperatura local y modificar la actividad neuronal independientemente de la opsina. Dependiendo de la longitud de onda, potencia, geometría de iluminación y duración del estímulo, se han documentado incrementos de temperatura que pueden alcanzar varios grados Celsius en determinadas condiciones experimentales.
Por esta razón, observar una modificación de la actividad neuronal durante una estimulación luminosa no demuestra automáticamente que el efecto sea exclusivamente optogenético. Es necesario controlar la potencia luminosa, la duración de la exposición, la temperatura y las condiciones experimentales apropiadas.
Otro problema es la fototoxicidad. Una exposición excesiva puede generar daño celular debido a calentamiento o a procesos fotoquímicos. El riesgo depende de la intensidad luminosa, longitud de onda, frecuencia de estimulación, duración y características del tejido.
Existe además un problema de sobreexpresión de la opsina. Una cantidad excesiva de proteína puede modificar las propiedades fisiológicas de la membrana y producir efectos que no corresponden a la actividad normal de la célula. Por esta razón, la expresión debe ser suficientemente elevada para conseguir control óptico, pero no necesariamente tan elevada que altere significativamente la fisiología basal.
23. Limitaciones relacionadas con la entrega de luz
La luz no se propaga indefinidamente por el tejido biológico. La dispersión y absorción reducen la intensidad conforme aumenta la distancia desde la fuente. Este problema es particularmente importante para estructuras profundas del cerebro.
La solución tradicional ha sido implantar fibras ópticas. Sin embargo, una fibra implantada constituye un procedimiento invasivo y puede producir lesión mecánica, inflamación, desplazamiento o alteraciones del tejido circundante.
Por ello se investigan sistemas inalámbricos, dispositivos miniaturizados, estimulación mediante luz roja, fuentes microscópicas de iluminación y estrategias transcraneales. El objetivo general consiste en disminuir la invasividad y aumentar simultáneamente la profundidad y el volumen de tejido que pueden controlarse.
24. Limitaciones de la modificación genética
Para aplicar optogenética es necesario introducir material genético en las células. En investigación animal esto puede realizarse mediante animales transgénicos o vectores virales, pero una aplicación terapéutica en seres humanos plantea problemas adicionales de seguridad, especificidad y respuesta inmunitaria.
Los vectores adenoasociados presentan ventajas importantes para la transferencia genética, pero existen limitaciones relacionadas con su distribución, inmunogenicidad, capacidad de empaquetamiento y posibilidad de que la respuesta inmunitaria reduzca la eficacia o la duración de la expresión.
Además, una proteína optogenética constituye una proteína introducida artificialmente en el organismo. En una aplicación clínica prolongada, su inmunogenicidad y la estabilidad de su expresión deben estudiarse cuidadosamente.
25. El problema de la traducción clínica
La distancia entre una demostración experimental y un tratamiento médico es considerable. En un experimento con un ratón puede ser relativamente sencillo introducir una opsina en una región cerebral concreta e implantar una fibra óptica. En una persona, la misma estrategia plantea cuestiones relacionadas con seguridad quirúrgica, distribución del vector, inmunidad, permanencia de la expresión, especificidad celular, acceso óptico y regulación sanitaria.
Por ello, la optogenética tiene actualmente una situación muy particular: su valor como herramienta científica está ampliamente establecido, mientras que su utilización terapéutica directa en seres humanos sigue siendo mucho más limitada y experimental. La restauración parcial de visión representa una demostración clínica extraordinariamente importante, pero no equivale a una aplicación generalizada de la optogenética en neurología.
26. La importancia científica de la optogenética
La trascendencia de la optogenética no deriva únicamente de haber proporcionado una nueva manera de estimular neuronas. Su verdadero impacto consiste en haber permitido conectar causalmente genes, células, circuitos, fisiología y conducta dentro de un mismo experimento.
Antes de estas herramientas, muchas investigaciones podían establecer que una región cerebral estaba activa durante una determinada conducta, pero resultaba mucho más difícil determinar qué subpoblación celular era responsable y qué patrón temporal de actividad era relevante. La combinación de direccionamiento genético y control luminoso permitió estudiar estos problemas con una resolución considerablemente mayor.
Por ello, la optogenética puede considerarse no solamente una técnica experimental, sino un marco metodológico para establecer relaciones causales entre actividad celular y función biológica.
Fuente y lecturas recomendadas:
- Deisseroth, K. (2011). Optogenetics. Nature Methods, 8, 26–29. https://doi.org/10.1038/nmeth.f.324
- Tye, K. M., & Deisseroth, K. (2012). Optogenetic investigation of neural circuits underlying brain disease in animal models. Nature Reviews Neuroscience, 13, 251–266. https://doi.org/10.1038/nrn3171
- Emiliani, V., Entcheva, E., Hedrich, R., Hegemann, P., Konrad, K. R., Laan, W., & Scanziani, M. (2022). Optogenetics for light control of biological systems. Nature Reviews Methods Primers, 2, 55. https://doi.org/10.1038/s43586-022-00136-4
- Packer, A. M., Roska, B., & Häusser, M. (2013). Targeting neurons and photons for optogenetics. Nature Neuroscience, 16, 805–815. https://doi.org/10.1038/nn.3427
- Mattis, J., Tye, K. M., Ferenczi, E. A., Ramakrishnan, C., O’Shea, D. J., Prakash, R., Hyun, M., Fenno, L. E., Gradinaru, V., & Deisseroth, K. (2012). Principles for applying optogenetic tools derived from direct comparative analysis of microbial opsins. Nature Methods, 9, 159–172. https://doi.org/10.1038/nmeth.1808
- Govorunova, E. G., Sineshchekov, O. A., Li, H., & Spudich, J. L. (2017). Microbial rhodopsins: Diversity, mechanisms, and optogenetic applications. Annual Review of Biochemistry, 86, 845–872. https://doi.org/10.1146/annurev-biochem-101910-144233
- Wietek, J., & Prigge, M. (2016). Enhancing the performance of rhodopsin-based optogenetic tools. Current Opinion in Structural Biology, 45, 1–8.
- Chow, B. Y., & Boyden, E. S. (2012). Optogenetics and the future of neuroscience. Nature Neuroscience, 15, 1011–1019.
- Nagel, G., Szellas, T., Huhn, W., Kateriya, S., Adeishvili, N., Berthold, P., Ollig, D., Hegemann, P., & Bamberg, E. (2003). Channelrhodopsin-2, a directly light-gated cation-selective membrane channel. Proceedings of the National Academy of Sciences of the United States of America, 100(24), 13940–13945. https://doi.org/10.1073/pnas.1936192100
- Boyden, E. S., Zhang, F., Bamberg, E., Nagel, G., & Deisseroth, K. (2005). Millisecond-timescale, genetically targeted optical control of neural activity. Nature Neuroscience, 8, 1263–1268. https://doi.org/10.1038/nn1525
- Kim, C. K., Adhikari, A., & Deisseroth, K. (2017). Integration of optogenetics with complementary methodologies in systems neuroscience. Nature Reviews Neuroscience, 18, 222–235. https://doi.org/10.1038/nrn.2017.15
- Chow, B. Y., Han, X., Dobry, A. S., Qian, X., Chuong, A. S., Li, M., Henninger, M. A., Belfort, G. M., Lin, Y., Monahan, P. E., & Boyden, E. S. (2010). High-performance genetically targetable optical neural silencing by light-driven proton pumps. Nature, 463, 98–102. https://doi.org/10.1038/nature08652
- Emiliani, V., Cohen, A. E., Deisseroth, K., & Häusser, M. (2015). All-optical interrogation of neural circuits. Journal of Neuroscience, 35, 13917–13926.
- Maimon, B. E., Sparks, R. G., Sachdev, R. N. S., et al. (2017). A substrate for long-term, stable optogenetic control of neural circuits. La evidencia sobre iluminación profunda y las limitaciones ópticas se desarrolla también en revisiones metodológicas recientes.
- Busskamp, V., Picaud, S., Sahel, J.-A., & Roska, B. (2012). Optogenetic therapy for retinitis pigmentosa. Gene Therapy, 19, 169–175. https://doi.org/10.1038/gt.2011.155
- Paoletti, P., Ellis-Davies, G. C. R., & Mourot, A. (2019). Optical control of neuronal ion channels and receptors. Nature Reviews Neuroscience, 20, 514–532. https://doi.org/10.1038/s41583-019-0197-2
- Song, C., & Knöpfel, T. (2016). Optogenetics enlightens neuroscience drug discovery. Nature Reviews Drug Discovery, 15, 97–109. https://doi.org/10.1038/nrd.2015.15
- Adamantidis, A. R., Zhang, F., Aravanis, A. M., Deisseroth, K., & de Lecea, L. (2007). Neural substrates of awakening probed with optogenetic control of hypocretin neurons. Nature, 450, 420–424.
- Busskamp, V., Duebel, J., Balya, D., Fradot, M., Viney, T. J., Siegert, S., Groner, A. C., Cabuy, E., Forster, V., Seeliger, M., Biel, M., Humphries, P., Paques, M., Mohand-Said, S., Trono, D., Deisseroth, K., Sahel, J.-A., & Roska, B. (2010). Genetic reactivation of cone photoreceptors restores visual responses in retinitis pigmentosa. Science, 329, 413–417.
- Sahel, J.-A., & Dalkara, D. (2019). Gene therapy for retinal dystrophy. Nature Medicine, 25, 198–199. https://doi.org/10.1038/s41591-019-0346-1
- Sahel, J.-A., Boulanger-Scemama, E., Pagot, C., et al. (2021). Partial recovery of visual function in a blind patient after optogenetic therapy. Nature Medicine, 27, 1223–1229. https://doi.org/10.1038/s41591-021-01351-4
- A synthetic opsin restores vision in patients with severe retinal degeneration. (2025). Nature Medicine. La investigación clínica inicial describió administración de una opsina sintética mediante un vector adenoasociado y mejoría funcional durante el seguimiento comunicado.
- Entcheva, E. (2014). Cardiac optogenetics. American Journal of Physiology-Heart and Circulatory Physiology, 306, H1173–H1185. La aplicación cardíaca de la optogenética se ha desarrollado para estudiar excitabilidad, estimulación, sincronización y arritmias.
- Nussinovitch, U., & Gepstein, L. (2015). Optogenetics for in vivo cardiac pacing and resynchronization therapies. Nature Biotechnology, 33, 750–754. https://doi.org/10.1038/nbt.3268
- Toettcher, J. E., Voigt, C. A., Weiner, O. D., & Lim, W. A. (2011). The promise of optogenetics in cell biology: Interrogating molecular circuits in space and time. Nature Methods, 8, 35–38.
- Knöpfel, T. (2012). Genetically encoded optical indicators for the analysis of neuronal circuits. Nature Reviews Neuroscience, 13, 687–700. https://doi.org/10.1038/nrn3293
- Knöpfel, T., & Song, C. (2019). Optical voltage imaging in neurons: Moving from technology development to practical tool. Nature Reviews Neuroscience, 20, 719–727. https://doi.org/10.1038/s41583-019-0231-4
- Optogenetics for light control of biological systems. (2022). Nature Reviews Methods Primers, 2, 55. La revisión metodológica analiza específicamente calentamiento, fototoxicidad, iluminación y limitaciones experimentales.
- Packer, A. M., & Häusser, M. (2012). The latest advances in optogenetics. Las consideraciones experimentales sobre especificidad, iluminación y artefactos se encuentran desarrolladas en las revisiones metodológicas del campo.
- Optogenetics in the nonhuman primate. (2013). Las consideraciones sobre daño tisular, inserción de dispositivos y calentamiento constituyen limitaciones relevantes para la transición hacia modelos de mayor tamaño.
- Challenges for therapeutic applications of opsin-based optogenetic tools in humans. (2020). La revisión analiza inmunogenicidad, vectores, expresión de opsinas, penetración óptica y requisitos para la aplicación clínica.
- Roadmap for direct and indirect translation of optogenetics into discoveries and therapies for humans. (2025). La revisión reciente aborda la transición desde los descubrimientos experimentales hacia aplicaciones terapéuticas y las cuestiones de seguridad, inmunidad, especificidad molecular y regulación.
Aprende administración paso a paso
ADMINISTRACION DESDE CERO

