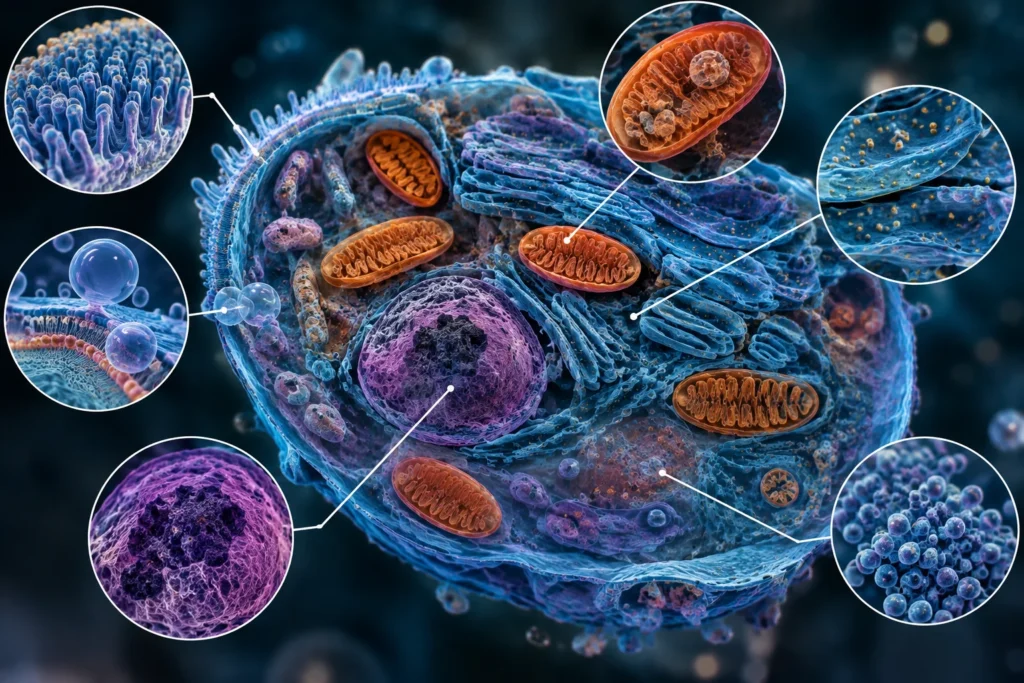

Los cambios intracelulares asociados a la lesión celular son modificaciones estructurales y funcionales que aparecen cuando una célula pierde la capacidad de mantener su equilibrio energético, la integridad de sus membranas, la concentración adecuada de iones y la organización de sus componentes internos. Muchos de estos cambios se detectan con mayor precisión mediante microscopía electrónica porque esta técnica permite examinar las membranas biológicas, las crestas mitocondriales, los ribosomas, las cisternas del retículo endoplasmático y la distribución de la cromatina con una resolución superior a la de la microscopía óptica convencional. Estas alteraciones constituyen manifestaciones morfológicas de procesos bioquímicos interrelacionados, entre los que destacan la disminución de la producción de trifosfato de adenosina, el aumento de la permeabilidad de las membranas, la alteración de la homeostasis del calcio y la modificación de la síntesis de proteínas. Su intensidad y reversibilidad dependen del tipo de agresión, de su duración y de la capacidad metabólica de la célula para recuperar la homeostasis.
La membrana plasmática suele presentar algunas de las primeras alteraciones ultraestructurales durante la lesión celular. Entre ellas se encuentran la formación de bullas, el aplanamiento y la distorsión de las microvellosidades y el aumento de la laxitud de las uniones intercelulares. Estas modificaciones están relacionadas con el deterioro de los mecanismos que mantienen la estructura del citoesqueleto y la organización de la membrana, así como con las alteraciones del equilibrio iónico y osmótico. La disminución de la disponibilidad de trifosfato de adenosina compromete el funcionamiento de las bombas iónicas dependientes de energía, especialmente la sodio-potasio adenosina trifosfatasa. Como consecuencia, el sodio tiende a acumularse en el interior celular, el agua se desplaza hacia el citoplasma y se produce tumefacción celular. Paralelamente, la alteración de las interacciones entre la membrana plasmática y el citoesqueleto puede favorecer la aparición de protrusiones o bullas en la superficie celular.
Las bullas son elevaciones redondeadas de la membrana plasmática que se forman cuando determinadas regiones de esta pierden su organización normal y se separan funcionalmente de los elementos del citoesqueleto que contribuyen a estabilizarlas. Su aparición puede reflejar alteraciones en la distribución de los lípidos y las proteínas de membrana, cambios en la tensión superficial y modificaciones de la estructura cortical de actina. En determinadas condiciones de lesión reversible, estas protrusiones pueden desaparecer si se restablecen las condiciones metabólicas y estructurales necesarias para recuperar la integridad celular. Sin embargo, cuando el daño progresa y la membrana pierde de manera irreversible su capacidad para mantener la permeabilidad selectiva, las alteraciones pueden culminar en la ruptura de la membrana y la muerte celular. Por ello, las bullas no deben interpretarse aisladamente como una prueba definitiva de lesión irreversible, ya que su significado depende del contexto celular y de la evolución del daño.
El aplanamiento y la distorsión de las microvellosidades también reflejan una alteración de la arquitectura de la superficie celular. Las microvellosidades son prolongaciones de la membrana plasmática sostenidas por haces de filamentos de actina y especializadas en aumentar la superficie disponible para el intercambio de sustancias. En células epiteliales, como los enterocitos y las células de los túbulos renales, su organización resulta fundamental para mantener funciones de absorción y transporte. Cuando la lesión altera el citoesqueleto, modifica las concentraciones intracelulares de calcio o compromete el suministro energético, los filamentos que sostienen estas prolongaciones pueden reorganizarse o desintegrarse parcialmente. Como consecuencia, las microvellosidades pierden su disposición regular, se acortan, se aplanan o se deforman. Estas modificaciones reducen la superficie funcional de la membrana y pueden acompañarse de alteraciones del transporte transmembrana, aunque la magnitud del efecto depende del tipo celular y de la extensión de la lesión.
El aumento de la laxitud de las uniones intercelulares se relaciona con la alteración de los complejos proteicos que mantienen la cohesión entre células adyacentes y regulan el paso de sustancias a través de los epitelios. Las uniones estrechas contribuyen a limitar el tránsito paracelular, mientras que las uniones adherentes y los desmosomas proporcionan cohesión mecánica mediante conexiones con el citoesqueleto. La lesión celular puede modificar la organización de estas proteínas, alterar su anclaje al citoesqueleto y favorecer su redistribución en la membrana. En consecuencia, las células pueden perder parte de su adhesión y aumentar la permeabilidad del espacio intercelular. Este fenómeno es especialmente relevante en tejidos que dependen de una barrera epitelial o endotelial funcional, porque puede facilitar el desplazamiento no regulado de agua y solutos y contribuir al edema tisular. No obstante, las alteraciones de las uniones intercelulares también dependen de señales de regulación celular y no se explican exclusivamente por la pérdida de energía.
Las mitocondrias presentan dos alteraciones características: la tumefacción y la aparición de pequeñas densidades amorfas en su matriz. La tumefacción mitocondrial se produce principalmente cuando disminuye la disponibilidad de energía y se altera el control del transporte de iones a través de las membranas. El aumento del sodio y del calcio intracelulares, junto con las modificaciones del potencial de membrana mitocondrial, favorece la entrada de agua y la expansión del compartimento interno. Este fenómeno puede acompañarse de distensión de la matriz y alteraciones de las crestas mitocondriales, que contienen los complejos necesarios para la fosforilación oxidativa. En consecuencia, disminuye la eficiencia de la producción de energía y se agrava el deterioro de los mecanismos celulares que dependen de ella. La tumefacción puede ser reversible si se elimina oportunamente la causa de la lesión y se restablece la función mitocondrial.
Las densidades amorfas mitocondriales son acumulaciones de material que se observan como regiones de aspecto irregular y densidad electrónica variable mediante microscopía electrónica. Es importante distinguir las pequeñas densidades que pueden acompañar a las alteraciones iniciales de las grandes acumulaciones amorfas asociadas con una lesión mitocondrial grave. Estas últimas pueden contener componentes minerales, especialmente calcio y fosfato, acumulados en condiciones de alteración de la homeostasis iónica y de la permeabilidad mitocondrial. Su aparición en determinadas condiciones, en particular durante la lesión isquémica intensa, se relaciona con un deterioro profundo de la función mitocondrial y puede indicar que la célula ha alcanzado un punto de lesión difícilmente reversible. Por tanto, no todas las densidades amorfas tienen idéntico significado pronóstico: su interpretación requiere considerar su tamaño, su localización y las demás alteraciones ultraestructurales presentes.
El retículo endoplasmático, especialmente su región rugosa, también experimenta cambios importantes durante la lesión celular. Su dilatación consiste en el ensanchamiento de las cisternas membranosas que forman esta red intracelular. Puede producirse como consecuencia de alteraciones osmóticas, acumulación de agua y perturbaciones en el transporte de iones. Al mismo tiempo, la disminución de la disponibilidad de trifosfato de adenosina afecta numerosos procesos celulares necesarios para mantener la organización y el funcionamiento de los compartimentos membranosos. La dilatación del retículo endoplasmático constituye, por tanto, una manifestación de la alteración de la homeostasis intracelular y puede acompañarse de cambios en la síntesis, el procesamiento y el transporte de proteínas.
La separación de los ribosomas del retículo endoplasmático rugoso se explica por la alteración de las interacciones que mantienen asociados estos complejos de síntesis proteica con la membrana. Los ribosomas traducen la información contenida en el ácido ribonucleico mensajero para producir proteínas; aquellos asociados al retículo endoplasmático participan principalmente en la síntesis de proteínas destinadas a la secreción, a las membranas celulares y a determinados compartimentos intracelulares. Cuando la célula sufre hipoxia o isquemia, la disminución de la producción de energía y las alteraciones metabólicas pueden interferir en la traducción y favorecer el desprendimiento de los ribosomas. Este cambio reduce la capacidad de síntesis proteica y compromete la renovación de las proteínas necesarias para mantener las membranas, los sistemas enzimáticos y la recuperación celular.
La disociación de los polisomas constituye otra manifestación de esta alteración. Los polisomas son conjuntos de varios ribosomas que traducen simultáneamente una misma molécula de ácido ribonucleico mensajero. Su disgregación indica que disminuye la organización de los complejos de traducción y puede acompañarse de una reducción de la síntesis de proteínas. Esta respuesta es coherente con la adaptación celular a condiciones en las que escasean los recursos energéticos o se acumulan señales de estrés. La disminución de la síntesis proteica permite comprender por qué una célula lesionada pierde progresivamente la capacidad de renovar proteínas estructurales, reparar componentes dañados y mantener sus funciones especializadas. Sin embargo, la intensidad de este fenómeno varía según la naturaleza de la lesión y no implica, por sí sola, que la muerte celular sea inevitable.
En el núcleo, una de las alteraciones ultraestructurales características de la lesión celular reversible es la formación de grumos de cromatina. La cromatina está constituida por ácido desoxirribonucleico asociado a proteínas, principalmente histonas, y su organización regula la accesibilidad de la información genética. En condiciones normales, la cromatina presenta distintos grados de compactación de acuerdo con la actividad funcional de cada región del genoma. Durante la lesión celular, los cambios del metabolismo energético pueden provocar acumulación de ácido láctico y disminución del pH intracelular. Estas modificaciones alteran las interacciones entre los componentes nucleares y favorecen la condensación irregular de la cromatina, que se agrupa en masas más densas y heterogéneas. La microscopía electrónica permite distinguir con precisión esta distribución anormal del material nuclear.
La formación de grumos de cromatina debe diferenciarse de las alteraciones nucleares características de la lesión irreversible. En una fase inicial, la condensación de la cromatina puede desaparecer si se restablecen las condiciones metabólicas y se recupera la homeostasis celular. Si la lesión persiste o se intensifica, pueden aparecer alteraciones nucleares más graves, como la picnosis, que consiste en la contracción del núcleo y la condensación intensa de la cromatina; la cariorrexis, que corresponde a la fragmentación nuclear; y la cariolisis, que representa la pérdida progresiva del material nuclear por degradación. Estos cambios no son equivalentes entre sí y, en conjunto con las alteraciones de las membranas y las mitocondrias, contribuyen a establecer si el daño ha progresado hacia la muerte celular.
Las alteraciones de la membrana plasmática, las mitocondrias, el retículo endoplasmático y el núcleo representan manifestaciones interdependientes de la lesión celular. La disminución de la producción de energía compromete el transporte de iones, favorece la entrada de agua, altera el citoesqueleto y modifica la organización de las membranas. A su vez, la disfunción mitocondrial y la alteración de la síntesis proteica dificultan la recuperación de la célula, mientras que los cambios en la cromatina reflejan perturbaciones del entorno metabólico nuclear. La microscopía electrónica resulta especialmente útil para reconocer estas modificaciones porque permite visualizar directamente la arquitectura de los orgánulos y de las membranas. No obstante, las imágenes ultraestructurales deben interpretarse junto con el contexto fisiopatológico, ya que ninguna de estas alteraciones aislada permite establecer de forma universal la causa de la lesión o determinar con certeza su reversibilidad.
Fuente y lecturas recomendadas:
- Miller, M. A., & Zachary, J. F. (2017). Mechanisms and morphology of cellular injury, adaptation, and death. En J. F. Zachary (Ed.), Pathologic basis of veterinary disease (6.ª ed., pp. 2–43.e19). Elsevier. https://doi.org/10.1016/B978-0-323-35775-3.00001-1
- Kumar, V., Abbas, A. K., & Aster, J. C. (2015). Robbins and Cotran pathologic basis of disease (9.ª ed.). Elsevier.
- Kumar, V., Abbas, A. K., & Aster, J. C. (2018). Robbins basic pathology (10.ª ed.). Elsevier.
- Ultrastructural alterations during ischemia and reperfusion in human hearts during cardiac surgery. (1977). Journal of Molecular and Cellular Cardiology, 9(3), 175–182. https://doi.org/10.1016/0022-2828(77)90028-1
Aprende administración paso a paso
ADMINISTRACION DESDE CERO