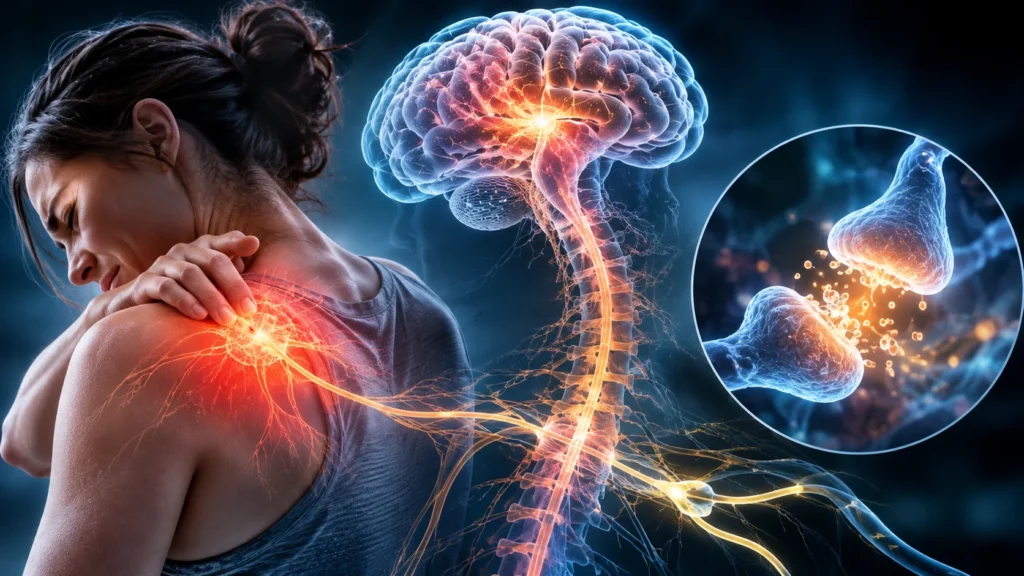

La nocicepción y la modulación del dolor son procesos neurofisiológicos estrechamente relacionados que permiten al organismo detectar estímulos potencialmente dañinos, transmitir información sobre una amenaza tisular y regular la intensidad con la que dicha información es experimentada. Aunque ambos fenómenos participan en la protección del organismo, no son equivalentes: la nocicepción corresponde al procesamiento neuronal de estímulos nocivos, mientras que el dolor constituye una experiencia sensorial y emocional desagradable asociada con un daño tisular real o potencial, o semejante a la asociada con dicho daño.
Esta distinción es fundamental porque el dolor no representa una reproducción directa de la intensidad de la lesión. La experiencia dolorosa depende de la actividad de los nociceptores, la transmisión de señales hacia el sistema nervioso central, el procesamiento cerebral, los mecanismos de inhibición y facilitación neuronal, las experiencias previas, el estado emocional y el contexto en el que ocurre el estímulo. Por esta razón, puede existir nocicepción sin una experiencia consciente de dolor, como sucede durante determinadas condiciones de anestesia, y también puede existir dolor sin una lesión tisular identificable o sin actividad nociceptiva periférica persistente, como ocurre en algunos síndromes de dolor neuropático y nociplástico.
La nocicepción comienza cuando los nociceptores, terminaciones nerviosas periféricas especializadas de neuronas sensitivas primarias, detectan estímulos que pueden producir daño tisular. Estos receptores se encuentran distribuidos en la piel, los músculos, las articulaciones, las vísceras y otras estructuras del organismo. Su función consiste en transformar diferentes formas de energía potencialmente lesiva en señales eléctricas que pueden transmitirse hacia la médula espinal y posteriormente hacia distintas regiones encefálicas.
Los nociceptores presentan una elevada sensibilidad ante estímulos mecánicos, térmicos y químicos potencialmente dañinos. Los estímulos mecánicos comprenden presiones intensas, compresiones y deformaciones tisulares; los térmicos incluyen temperaturas extremas capaces de lesionar las células; y los químicos comprenden sustancias liberadas durante la inflamación o el daño celular. Entre estas sustancias se encuentran los protones, el ATP, la bradicinina, las prostaglandinas, la histamina, la serotonina y determinados factores neurotróficos. Su presencia modifica la excitabilidad de las terminaciones nerviosas y puede aumentar la sensibilidad ante estímulos posteriores.
La transducción nociceptiva es el proceso mediante el cual un estímulo nocivo se convierte en una señal eléctrica. Este mecanismo depende de canales iónicos especializados presentes en las membranas de las terminaciones nerviosas. Entre los más importantes se encuentran los canales TRPV1, TRPA1 y determinados canales sensibles a estímulos mecánicos y químicos. El canal TRPV1 responde especialmente al calor nocivo, la acidez y la capsaicina, sustancia responsable de la sensación de ardor producida por los chiles. Por su parte, TRPA1 participa en la detección de determinados compuestos irritantes y señales químicas relacionadas con el daño tisular.
Cuando estos canales se activan, permiten el ingreso de iones, principalmente sodio y calcio, lo que produce una despolarización de la membrana neuronal. Si esta despolarización alcanza el umbral necesario, se generan potenciales de acción que se propagan a lo largo de la fibra nerviosa hacia el sistema nervioso central. La intensidad y frecuencia de estos impulsos contribuyen a determinar la información nociceptiva transmitida, aunque no establecen por sí solas la intensidad del dolor experimentado.
Las neuronas nociceptivas primarias presentan diferentes características estructurales y funcionales. Las fibras Aδ están recubiertas por una cantidad limitada de mielina, lo que permite una conducción relativamente rápida de los impulsos nerviosos. Se relacionan principalmente con la percepción inicial del dolor agudo, localizado y de carácter punzante. Las fibras C carecen de mielina y conducen los impulsos a menor velocidad; participan principalmente en el dolor tardío, difuso, persistente y frecuentemente acompañado de sensaciones urentes. Esta diferenciación explica por qué, después de un estímulo lesivo, puede aparecer primero una sensación dolorosa rápida y posteriormente otra más lenta y prolongada.
Una vez generados los potenciales de acción, las señales nociceptivas alcanzan los ganglios de las raíces dorsales, donde se encuentran los cuerpos celulares de las neuronas sensitivas primarias. Sus prolongaciones centrales ingresan en la médula espinal a través de las raíces posteriores y establecen conexiones sinápticas en el asta dorsal, particularmente en las láminas I, II y V de Rexed. Esta región constituye uno de los principales centros de procesamiento inicial de la información nociceptiva.
En las sinapsis del asta dorsal se liberan neurotransmisores y neuropéptidos que permiten la transmisión de la información entre neuronas. El glutamato es uno de los principales neurotransmisores excitadores y actúa sobre receptores ionotrópicos, como los receptores AMPA y NMDA. También participan neuropéptidos como la sustancia P y el péptido relacionado con el gen de la calcitonina, que contribuyen a modular la excitabilidad neuronal y la transmisión de señales nociceptivas.
La activación de los receptores NMDA adquiere especial importancia cuando existe estimulación nociceptiva intensa o repetida. En condiciones basales, estos receptores presentan un bloqueo por iones de magnesio. La despolarización de la membrana favorece la eliminación de dicho bloqueo y permite el ingreso de calcio, lo que activa mecanismos intracelulares relacionados con la plasticidad sináptica. Como consecuencia, las neuronas del asta dorsal pueden incrementar su respuesta ante estímulos posteriores, fenómeno que constituye uno de los mecanismos de sensibilización central.
Desde la médula espinal, la información nociceptiva asciende hacia estructuras encefálicas mediante diferentes vías nerviosas. Una de las más importantes es el sistema anterolateral, que comprende el tracto espinotalámico y otras proyecciones espinales. Las neuronas de segundo orden cruzan generalmente hacia el lado contrario de la médula espinal y ascienden hacia el tronco encefálico, el tálamo y otras regiones cerebrales.
El tálamo funciona como una estructura fundamental para la distribución y el procesamiento de la información nociceptiva. Desde sus diferentes núcleos se establecen conexiones con regiones corticales y subcorticales que participan en los componentes sensoriales, emocionales y cognitivos del dolor. La corteza somatosensorial contribuye a identificar la localización, intensidad y características físicas del estímulo doloroso. La ínsula participa en la integración de información interoceptiva y en la representación de los estados corporales. La corteza cingulada anterior interviene en los componentes afectivos y motivacionales del dolor, mientras que otras regiones prefrontales participan en su interpretación, valoración y regulación cognitiva.
Por consiguiente, la experiencia dolorosa no se genera en una única estructura cerebral. Surge de la interacción entre diferentes redes neuronales que procesan simultáneamente las características sensoriales del estímulo, su significado emocional y las respuestas conductuales necesarias para proteger al organismo.
La modulación del dolor comprende los mecanismos mediante los cuales el sistema nervioso puede disminuir o aumentar la transmisión de información nociceptiva. Estos mecanismos actúan en diferentes niveles, desde las terminaciones nerviosas periféricas hasta la médula espinal y las estructuras encefálicas. Su función consiste en adaptar la respuesta dolorosa a las condiciones fisiológicas, ambientales y conductuales del individuo.
A nivel periférico, la inflamación modifica la sensibilidad de los nociceptores mediante la liberación de mediadores químicos. Las prostaglandinas, especialmente la prostaglandina E2, favorecen la sensibilización de las terminaciones nerviosas al modificar la actividad de canales iónicos y otros mecanismos intracelulares. La bradicinina activa receptores específicos y contribuye a la excitación de las neuronas nociceptivas. La histamina y determinadas citocinas inflamatorias también participan en la modificación de la sensibilidad periférica.
Este proceso puede producir hiperalgesia, definida como un incremento de la respuesta dolorosa ante un estímulo que normalmente resulta doloroso. También puede originar alodinia, que consiste en la aparición de dolor ante estímulos que habitualmente no producen dolor, como el roce ligero de la piel. Ambos fenómenos reflejan modificaciones en la excitabilidad de los sistemas nociceptivos y pueden aparecer tanto por mecanismos periféricos como centrales.
La sensibilización periférica ocurre cuando los nociceptores disminuyen su umbral de activación y aumentan su respuesta ante estímulos posteriores. Esto significa que estímulos de menor intensidad pueden producir una descarga neuronal más elevada. Este mecanismo tiene una función protectora durante la reparación de los tejidos, porque favorece que la región lesionada permanezca protegida frente a nuevas agresiones. Sin embargo, cuando persiste de manera excesiva, puede contribuir al mantenimiento del dolor.
La sensibilización central se desarrolla cuando las neuronas del sistema nervioso central incrementan su capacidad de respuesta ante la información nociceptiva. Este fenómeno involucra modificaciones en la transmisión sináptica, la actividad de los receptores NMDA, la regulación de los canales iónicos y la participación de células gliales. Los astrocitos y la microglía pueden liberar mediadores inflamatorios y sustancias moduladoras que modifican la excitabilidad de las neuronas del asta dorsal. De esta manera, una estimulación nociceptiva repetida puede producir una amplificación persistente de la respuesta neuronal.
La modulación descendente constituye otro mecanismo fundamental para regular el dolor. Consiste en la influencia que ejercen determinadas regiones encefálicas sobre los circuitos nociceptivos de la médula espinal. Entre las estructuras más importantes se encuentran la corteza prefrontal, la corteza cingulada anterior, la amígdala, el hipotálamo, la sustancia gris periacueductal y la médula rostroventromedial.
La sustancia gris periacueductal, localizada en el mesencéfalo, participa en la organización de respuestas defensivas y en la inhibición de la transmisión nociceptiva. Esta estructura recibe información de regiones corticales y límbicas y proyecta hacia la médula rostroventromedial, desde donde se originan conexiones descendentes que alcanzan el asta dorsal de la médula espinal.
La médula rostroventromedial contiene poblaciones neuronales funcionalmente diferentes. Algunas neuronas favorecen la inhibición de la transmisión nociceptiva, mientras que otras pueden facilitarla. Por esta razón, las vías descendentes no producen exclusivamente analgesia, sino que pueden disminuir o aumentar la percepción dolorosa dependiendo de las condiciones fisiológicas y del contexto conductual.
Entre los principales neurotransmisores implicados en la modulación descendente se encuentran la serotonina, la noradrenalina, los opioides endógenos y el ácido gamma-aminobutírico. La noradrenalina puede inhibir la transmisión nociceptiva mediante la activación de receptores alfa-2 adrenérgicos en el asta dorsal. La serotonina presenta efectos variables, ya que puede activar receptores que producen inhibición o facilitación de acuerdo con su localización y subtipo receptor.
Los opioides endógenos, como las endorfinas, las encefalinas y las dinorfinas, participan en la regulación fisiológica del dolor. Actúan mediante receptores opioides específicos, principalmente los receptores mu, delta y kappa, distribuidos en estructuras periféricas, espinales y encefálicas. Su activación puede inhibir la liberación de neurotransmisores excitadores en las terminales presinápticas y reducir la excitabilidad de las neuronas postsinápticas. Como resultado, disminuye la transmisión de información nociceptiva hacia los centros superiores.
La modulación del dolor también depende de factores cognitivos y emocionales. La atención dirigida hacia un estímulo doloroso puede incrementar su relevancia perceptiva, mientras que la distracción y determinadas estrategias de regulación cognitiva pueden disminuir la intensidad experimentada. El miedo, la ansiedad, el estrés y las experiencias negativas pueden favorecer la facilitación del dolor mediante circuitos relacionados con la amígdala, el hipotálamo y otras estructuras del sistema límbico. Por el contrario, las expectativas positivas y la sensación de control pueden contribuir a reducir la experiencia dolorosa mediante mecanismos de analgesia descendente.
Un fenómeno particularmente importante es el efecto placebo, mediante el cual las expectativas de recibir un tratamiento eficaz pueden producir una disminución real de la experiencia dolorosa. Este fenómeno se relaciona con la activación de circuitos cerebrales de modulación descendente y con la participación de sistemas opioides endógenos y otros mecanismos neuroquímicos. Su existencia demuestra que el dolor no depende exclusivamente de la lesión periférica, sino también de los procesos de interpretación y regulación cerebral.
El efecto nocebo representa el fenómeno contrario. Las expectativas negativas, el miedo a experimentar dolor y la anticipación de consecuencias adversas pueden aumentar la percepción dolorosa. Esto puede ocurrir mediante mecanismos de facilitación descendente y modificaciones en la actividad de diferentes sistemas de neurotransmisión, lo que demuestra la influencia de los procesos psicológicos sobre la fisiología nociceptiva.
Es importante distinguir entre dolor nociceptivo, neuropático y nociplástico. El dolor nociceptivo surge por la activación de nociceptores como consecuencia de un daño real o potencial en tejidos no nerviosos, como ocurre en una lesión muscular, una quemadura o un proceso inflamatorio. El dolor neuropático se produce por una lesión o enfermedad del sistema nervioso somatosensorial y puede manifestarse mediante ardor, descargas eléctricas, hormigueo, alodinia o hiperalgesia. El dolor nociplástico se relaciona con una alteración de la nocicepción sin evidencia clara de daño tisular que active los nociceptores ni de una lesión o enfermedad del sistema somatosensorial que explique completamente el dolor.
Estas categorías permiten comprender por qué diferentes pacientes pueden experimentar dolor ante condiciones fisiopatológicas distintas. También explican por qué el tratamiento no debe limitarse exclusivamente a eliminar una posible lesión, sino que debe considerar los mecanismos periféricos, espinales, encefálicos, emocionales y conductuales que participan en la experiencia dolorosa.
La nocicepción constituye el sistema de detección y procesamiento neuronal de los estímulos potencialmente dañinos, mientras que la modulación del dolor representa el conjunto de mecanismos que regulan la transmisión y la interpretación de esa información. La interacción entre ambos procesos permite que el sistema nervioso genere respuestas protectoras proporcionales a las condiciones del organismo, aunque también puede producir amplificación o persistencia del dolor cuando aparecen alteraciones en los mecanismos de regulación.
La razón fundamental por la que el dolor no puede considerarse una señal directa y proporcional del daño tisular es que su experiencia depende de una integración compleja de información periférica, actividad medular, procesamiento cerebral y mecanismos de modulación descendente. El sistema nervioso no se limita a recibir pasivamente las señales nociceptivas: las transforma, las compara con experiencias previas, las relaciona con el contexto emocional y regula continuamente su intensidad. Por ello, comprender la nocicepción y la modulación del dolor requiere estudiar tanto los mecanismos de transmisión neuronal como los procesos que amplifican, inhiben y dan significado a la experiencia dolorosa.
Fuente y lecturas recomendadas:
- Basbaum, A. I., Bautista, D. M., Scherrer, G., & Julius, D. (2009). Cellular and molecular mechanisms of pain. Cell, 139(2), 267–284. https://doi.org/10.1016/j.cell.2009.09.028
- Fields, H. (2004). State-dependent opioid control of pain. Nature Reviews Neuroscience, 5, 565–575. https://doi.org/10.1038/nrn1431
- Gebhart, G. F. (2004). Descending modulation of pain. Neuroscience & Biobehavioral Reviews, 27(8), 729–737. https://doi.org/10.1016/j.neubiorev.2003.11.008
- Julius, D., & Basbaum, A. I. (2001). Molecular mechanisms of nociception. Nature, 413, 203–210. https://doi.org/10.1038/35093019
- Kuner, R., & Flor, H. (2017). Structural plasticity and reorganisation in chronic pain. Nature Reviews Neuroscience, 18, 20–30. https://doi.org/10.1038/nrn.2016.162
- Raja, S. N., Carr, D. B., Cohen, M., Finnerup, N. B., Flor, H., Gibson, S., Keefe, F. J., Mogil, J. S., Ringkamp, M., Sluka, K. A., Song, X. J., Stevens, B., Sullivan, M. D., Tutelman, P. R., Ushida, T., & Vader, K. (2020). The revised International Association for the Study of Pain definition of pain: Concepts, challenges, and compromises. Pain, 161(9), 1976–1982. https://doi.org/10.1097/j.pain.0000000000001939
- Todd, A. J. (2010). Neuronal circuitry for pain processing in the dorsal horn. Nature Reviews Neuroscience, 11, 823–836. https://doi.org/10.1038/nrn2947
- Woolf, C. J. (2011). Central sensitization: Implications for the diagnosis and treatment of pain. Pain, 152(3 Suppl.), S2–S15. https://doi.org/10.1016/j.pain.2010.09.030
- Zhang, Y., et al. (2024). Central sensitization and pain: Pathophysiologic and clinical insights. Current Neuropharmacology, 22(1), 15–22. https://doi.org/10.2174/1570159X20666221012112725
Aprende administración paso a paso
ADMINISTRACION DESDE CERO