
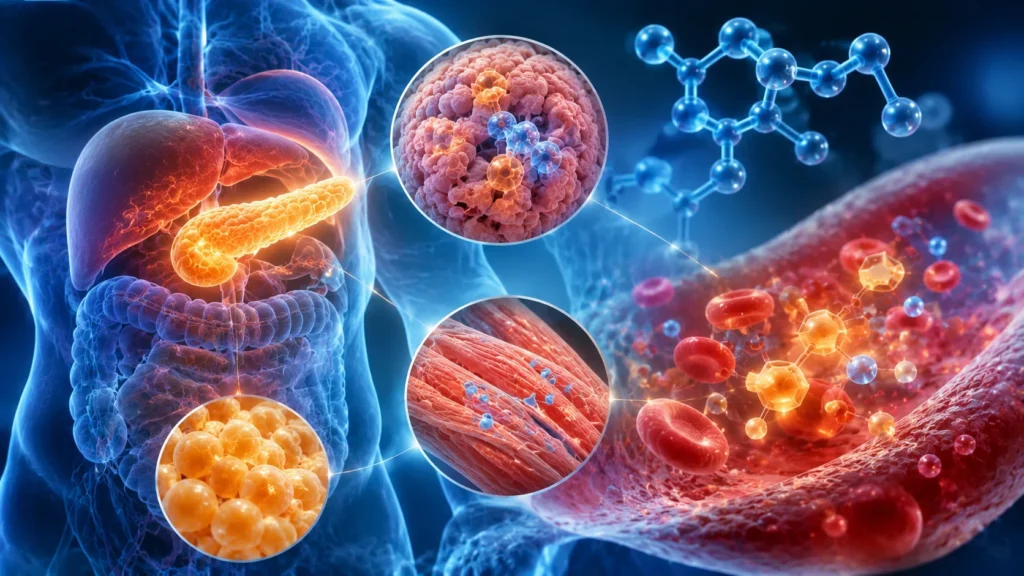

El metabolismo de la glucosa es el conjunto de procesos bioquímicos mediante los cuales el organismo obtiene, transforma, almacena y utiliza la glucosa para satisfacer las necesidades energéticas de las células. Constituye un mecanismo fundamental para mantener la homeostasis energética, debido a que la glucosa representa uno de los principales combustibles metabólicos del organismo y es especialmente importante para tejidos como el cerebro, los eritrocitos y el músculo esquelético. Su concentración en sangre debe mantenerse dentro de límites fisiológicos relativamente estrechos, ya que tanto la hipoglucemia como la hiperglucemia pueden comprometer el funcionamiento celular. Para conseguir esta estabilidad, intervienen diferentes órganos, principalmente el intestino, el hígado, el páncreas, el músculo esquelético, el tejido adiposo y los riñones, cuya actividad está coordinada por mecanismos hormonales y metabólicos.
La glucosa procede principalmente de los carbohidratos ingeridos en la alimentación, aunque también puede producirse dentro del organismo mediante procesos metabólicos específicos. Después de consumir alimentos que contienen carbohidratos, estos son degradados mediante enzimas digestivas hasta convertirse en monosacáridos, principalmente glucosa, galactosa y fructosa. La glucosa es absorbida por los enterocitos del intestino delgado mediante transportadores específicos, como el cotransportador de sodio y glucosa tipo 1, que permite su ingreso junto con sodio. Posteriormente, atraviesa la membrana basolateral mediante el transportador de glucosa tipo 2 y alcanza la circulación portal, a través de la cual llega directamente al hígado. Este órgano constituye el principal regulador de la disponibilidad sistémica de glucosa, debido a que puede captarla, almacenarla, metabolizarla o liberarla dependiendo de las necesidades energéticas del organismo.
Una vez que la glucosa llega a las células, debe atravesar la membrana plasmática mediante proteínas transportadoras denominadas transportadores de glucosa. Estos transportadores permiten el paso de la molécula mediante difusión facilitada, siguiendo su gradiente de concentración y sin consumir directamente energía metabólica. Existen diferentes tipos de transportadores con características y distribuciones específicas. El transportador de glucosa tipo 1 se encuentra ampliamente distribuido y participa en la captación basal de glucosa, mientras que el transportador de glucosa tipo 2 tiene una función importante en el hígado, el intestino, los riñones y las células beta pancreáticas. Por otra parte, el transportador de glucosa tipo 3 presenta una elevada afinidad por la glucosa y tiene especial importancia en las neuronas. El transportador de glucosa tipo 4 se encuentra principalmente en el músculo esquelético, el músculo cardíaco y el tejido adiposo, donde su incorporación a la membrana celular depende especialmente de la acción de la insulina y de la contracción muscular.
El principal mecanismo hormonal que regula el metabolismo de la glucosa depende de la acción coordinada de la insulina y el glucagón, dos hormonas pancreáticas con efectos fisiológicos opuestos. La insulina es producida por las células beta de los islotes pancreáticos y su secreción aumenta principalmente cuando se incrementa la concentración de glucosa en sangre después de una comida. La glucosa ingresa en las células beta y es metabolizada, aumentando la concentración intracelular de adenosín trifosfato. Este incremento provoca el cierre de los canales de potasio sensibles al adenosín trifosfato, lo que produce una despolarización de la membrana celular y la apertura de canales de calcio dependientes de voltaje. La entrada de calcio desencadena la exocitosis de los gránulos que contienen insulina, permitiendo su liberación hacia la circulación sanguínea. Este mecanismo permite que el páncreas responda rápidamente a las modificaciones de la glucemia y adapte la secreción hormonal a las necesidades metabólicas.
La insulina ejerce sus efectos mediante la unión a un receptor específico localizado en la membrana de las células diana. Este receptor posee actividad tirosina cinasa y, después de unirse a la hormona, experimenta un proceso de autofosforilación que activa proteínas intracelulares denominadas sustratos del receptor de insulina. Posteriormente, se activa la vía de la fosfatidilinositol 3-cinasa y la proteína cinasa B, también denominada Akt. Esta vía de señalización favorece la movilización de vesículas intracelulares que contienen transportadores de glucosa tipo 4 hacia la membrana plasmática. Como consecuencia, aumenta la entrada de glucosa en las células musculares y adiposas. Este mecanismo es fundamental porque permite retirar glucosa de la circulación sanguínea y utilizarla para producir energía o almacenarla en forma de glucógeno y lípidos.
En el hígado, la insulina estimula la glucogénesis, proceso mediante el cual la glucosa se transforma en glucógeno para su almacenamiento. También favorece la glucólisis y la lipogénesis, mientras inhibe la producción hepática de glucosa mediante la disminución de la gluconeogénesis y la glucogenólisis. En el músculo esquelético, incrementa la captación de glucosa y favorece la síntesis de glucógeno, que posteriormente puede utilizarse durante la contracción muscular. En el tejido adiposo, facilita la entrada de glucosa y favorece la síntesis y almacenamiento de triglicéridos, además de inhibir la lipólisis. Por lo tanto, la insulina es una hormona predominantemente anabólica, debido a que promueve el almacenamiento de nutrientes, la síntesis de moléculas complejas y la conservación de las reservas energéticas.
En contraste, el glucagón es una hormona producida por las células alfa de los islotes pancreáticos cuya secreción aumenta cuando disminuye la concentración de glucosa en sangre, particularmente durante el ayuno. Su función principal consiste en incrementar la disponibilidad de glucosa mediante la estimulación de la producción hepática. Para conseguirlo, se une a receptores específicos presentes en los hepatocitos y activa mecanismos intracelulares dependientes del adenosín monofosfato cíclico y de la proteína cinasa A. Esta señalización estimula la glucogenólisis, que consiste en la degradación del glucógeno almacenado en el hígado para liberar glucosa hacia la circulación. También favorece la gluconeogénesis, mediante la cual se sintetiza glucosa nueva a partir de precursores no glucídicos, como lactato, glicerol y determinados aminoácidos. De esta manera, el glucagón permite mantener el suministro de glucosa durante los periodos en los que no existe aporte alimentario.
La glucólisis es una de las principales vías metabólicas del metabolismo de la glucosa y consiste en la degradación de una molécula de glucosa hasta formar dos moléculas de piruvato. Este proceso ocurre en el citoplasma de prácticamente todas las células y comprende una serie de reacciones enzimáticas que permiten obtener energía mediante la formación de adenosín trifosfato y nicotinamida adenina dinucleótido reducido. Inicialmente, la glucosa es fosforilada por la hexocinasa o la glucocinasa, dependiendo del tejido, formando glucosa-6-fosfato. Posteriormente, atraviesa diferentes transformaciones que culminan en la producción de piruvato. Durante este proceso se obtiene una ganancia neta de 2 moléculas de adenosín trifosfato por cada molécula de glucosa metabolizada. La importancia de esta vía radica en que proporciona energía rápidamente y genera intermediarios metabólicos que pueden utilizarse en otras rutas bioquímicas.
Cuando existe suficiente oxígeno y las condiciones metabólicas son adecuadas, el piruvato producido durante la glucólisis ingresa en las mitocondrias y se transforma en acetil coenzima A mediante el complejo enzimático piruvato deshidrogenasa. El acetil coenzima A ingresa posteriormente en el ciclo de los ácidos tricarboxílicos, también denominado ciclo de Krebs, donde experimenta una serie de reacciones de oxidación que producen dióxido de carbono, nicotinamida adenina dinucleótido reducido y flavina adenina dinucleótido reducida. Estas moléculas transportadoras de electrones transfieren su energía hacia la cadena respiratoria mitocondrial, donde se establece un gradiente electroquímico de protones que permite la síntesis de adenosín trifosfato mediante la fosforilación oxidativa. Este mecanismo representa la principal fuente de producción de energía a partir de la oxidación completa de la glucosa en los tejidos con mitocondrias funcionales.
En condiciones de disponibilidad limitada de oxígeno o cuando la velocidad de la glucólisis supera la capacidad oxidativa mitocondrial, el piruvato puede transformarse en lactato mediante la enzima lactato deshidrogenasa. Esta reacción permite regenerar nicotinamida adenina dinucleótido oxidado, necesario para mantener la continuidad de la glucólisis. Aunque la producción de lactato se relaciona frecuentemente con el metabolismo anaerobio, también ocurre en condiciones de oxigenación normal, especialmente en tejidos con elevada actividad glucolítica. El lactato puede transportarse hacia otros órganos, principalmente el hígado, donde se utiliza como precursor para la síntesis de glucosa mediante la gluconeogénesis. Este intercambio metabólico constituye la base del ciclo de Cori, que permite reutilizar el lactato producido por determinados tejidos y contribuir al mantenimiento de la glucemia.
La glucogénesis representa el mecanismo mediante el cual el organismo almacena glucosa en forma de glucógeno, principalmente en el hígado y el músculo esquelético. El proceso comienza con la conversión de glucosa en glucosa-6-fosfato y posteriormente en glucosa-1-fosfato. Esta última se transforma en uridina difosfato glucosa, que constituye la forma activada utilizada por la enzima glucógeno sintasa para incorporar unidades de glucosa a la cadena de glucógeno. La enzima ramificante genera enlaces que permiten formar una estructura altamente ramificada, facilitando la síntesis y degradación rápida de esta reserva energética. El glucógeno hepático tiene como finalidad principal contribuir al mantenimiento de la concentración de glucosa en sangre durante el ayuno, mientras que el glucógeno muscular se utiliza localmente para proporcionar energía durante la actividad contráctil, debido a que el músculo esquelético carece de cantidades funcionalmente relevantes de glucosa-6-fosfatasa para liberar glucosa libre hacia la circulación.
La glucogenólisis es el proceso contrario a la glucogénesis y consiste en la degradación del glucógeno para obtener unidades de glucosa que puedan utilizarse en el metabolismo energético. Este mecanismo es estimulado principalmente por el glucagón en el hígado y por las catecolaminas en el hígado y el músculo. La enzima glucógeno fosforilasa rompe los enlaces glucosídicos del glucógeno y libera glucosa-1-fosfato, que posteriormente se transforma en glucosa-6-fosfato. En el hígado, esta molécula puede convertirse en glucosa libre mediante la acción de la glucosa-6-fosfatasa y liberarse hacia la circulación sanguínea. En el músculo, la glucosa-6-fosfato ingresa directamente en la glucólisis para generar energía durante la contracción. Por esta razón, aunque ambos tejidos almacenan glucógeno, sus reservas cumplen funciones fisiológicas diferentes.
La gluconeogénesis es una vía metabólica que permite sintetizar glucosa a partir de sustancias que no son carbohidratos. Se desarrolla principalmente en el hígado y, durante el ayuno prolongado, también adquiere importancia en la corteza renal. Sus principales precursores son el lactato, el glicerol y los aminoácidos glucogénicos, especialmente la alanina. El proceso utiliza reacciones que permiten superar los pasos irreversibles de la glucólisis mediante enzimas específicas, entre ellas la piruvato carboxilasa, la fosfoenolpiruvato carboxicinasa, la fructosa-1,6-bisfosfatasa y la glucosa-6-fosfatasa. La gluconeogénesis requiere energía en forma de adenosín trifosfato y guanosín trifosfato, por lo que constituye un proceso metabólicamente costoso. Su importancia fisiológica aumenta durante el ayuno, cuando las reservas de glucógeno hepático disminuyen y el organismo necesita mantener el suministro de glucosa para los tejidos que dependen de ella.
El metabolismo de la glucosa también está regulado por otras hormonas que modifican la sensibilidad de los tejidos a la insulina o favorecen la disponibilidad de energía. El cortisol incrementa la gluconeogénesis hepática y favorece la movilización de aminoácidos mediante el catabolismo proteico, especialmente durante el estrés prolongado. La adrenalina estimula la glucogenólisis y la lipólisis, preparando al organismo para responder ante situaciones que requieren un aumento rápido de la actividad metabólica. La hormona del crecimiento disminuye la utilización periférica de glucosa en determinados tejidos y favorece la movilización de ácidos grasos. Por otra parte, las incretinas, principalmente el péptido similar al glucagón tipo 1 y el polipéptido insulinotrópico dependiente de glucosa, aumentan la secreción de insulina en respuesta a la ingesta de alimentos. Estas hormonas contribuyen a coordinar la respuesta pancreática con la absorción intestinal de nutrientes.
El músculo esquelético constituye uno de los principales tejidos responsables de la captación y utilización de glucosa después de la alimentación. Su importancia metabólica se debe a que representa una proporción considerable de la masa corporal y posee una elevada capacidad para almacenar glucógeno y oxidar diferentes sustratos energéticos. La insulina favorece la captación de glucosa mediante la translocación de transportadores de glucosa tipo 4 hacia la membrana celular. Sin embargo, la contracción muscular también estimula la captación de glucosa mediante mecanismos parcialmente independientes de la insulina, entre los que participan la activación de la proteína cinasa activada por adenosín monofosfato y otras vías de señalización relacionadas con el estado energético celular. Este mecanismo explica por qué la actividad física aumenta la utilización de glucosa y puede mejorar la sensibilidad a la insulina incluso sin incrementar proporcionalmente su concentración circulante.
La regulación del metabolismo de la glucosa depende, por tanto, del equilibrio entre su ingreso a la circulación, su captación por los tejidos, su almacenamiento y su producción endógena. Después de una comida predomina la acción de la insulina, que facilita la utilización y el almacenamiento de glucosa, mientras que durante el ayuno aumenta la influencia del glucagón y de otras hormonas contrarreguladoras, que estimulan la producción hepática y renal de glucosa. Este equilibrio permite mantener el suministro energético de los órganos y evitar variaciones excesivas de la concentración sanguínea de glucosa. Cuando los mecanismos de regulación se alteran, pueden aparecer trastornos metabólicos caracterizados por hiperglucemia, hipoglucemia o resistencia a la insulina.
La resistencia a la insulina se caracteriza por una disminución de la respuesta biológica de los tejidos frente a concentraciones habituales de esta hormona. En el músculo esquelético, puede reducir la translocación de transportadores de glucosa tipo 4 y disminuir la captación de glucosa. En el hígado, dificulta la supresión de la producción endógena de glucosa, permitiendo que continúen la gluconeogénesis y la glucogenólisis incluso cuando las concentraciones de insulina son elevadas. En el tejido adiposo, disminuye la capacidad de la insulina para inhibir la lipólisis, aumentando la liberación de ácidos grasos libres hacia la circulación. La exposición prolongada a estos ácidos grasos puede favorecer la acumulación de intermediarios lipídicos que interfieren con la señalización de la insulina. Como consecuencia, se establece un desequilibrio metabólico que contribuye al desarrollo de hiperglucemia y diabetes mellitus tipo 2.
El metabolismo de la glucosa representa un sistema integrado de regulación energética en el que participan procesos digestivos, transportadores celulares, vías enzimáticas y mecanismos hormonales. La glucólisis permite obtener energía a partir de la degradación de glucosa, mientras que la glucogénesis y la glucogenólisis regulan el almacenamiento y la movilización de las reservas de glucógeno. La gluconeogénesis garantiza la producción de glucosa durante el ayuno, y la insulina y el glucagón coordinan los cambios metabólicos de acuerdo con la disponibilidad de nutrientes. La interacción entre estos mecanismos permite mantener la homeostasis glucémica y asegurar el suministro continuo de energía a los tejidos. Por ello, cualquier alteración persistente de la secreción hormonal, la captación celular o la producción hepática de glucosa puede comprometer el equilibrio metabólico y favorecer el desarrollo de enfermedades como la diabetes mellitus tipo 2.
Fuente y lecturas recomendadas:
1. Petersen, M. C., Vatner, D. F., & Shulman, G. I. (2017). Regulation of hepatic glucose metabolism in health and disease. Nature Reviews Endocrinology, 13, 572–587. https://doi.org/10.1038/nrendo.2017.80
2. Richter, E. A., Bilan, P. J., & Klip, A. (2025). A comprehensive view of muscle glucose uptake: Regulation by insulin, contractile activity, and exercise. Physiological Reviews, 105(3), 1867–1945. https://doi.org/10.1152/physrev.00033.2024
3. Leto, D., & Saltiel, A. R. (2012). Regulation of glucose transport by insulin: Traffic control of GLUT4. Nature Reviews Molecular Cell Biology, 13, 383–396. https://doi.org/10.1038/nrm3351
4. Cherrington, A. D. (2008). Physiology of glucagon action on glucose metabolism. Endocrinology and Metabolism Clinics of North America, 37(4), 703–719.
5. Petersen, M. C., & Shulman, G. I. (2018). Mechanisms of insulin action and insulin resistance. Physiological Reviews, 98(4), 2133–2223. https://doi.org/10.1152/physrev.00063.2017
6. Rines, A. K., Sharabi, K., Tavares, C. D. J., & Puigserver, P. (2016). Targeting hepatic glucose metabolism in the treatment of type 2 diabetes. Nature Reviews Drug Discovery, 15, 786–804. https://doi.org/10.1038/nrd.2016.151
7. Nirmalan, N., & Nirmalan, M. (2020). Hormonal control of metabolism: Regulation of plasma glucose. Anaesthesia & Intensive Care Medicine, 21(11), 578–583. https://doi.org/10.1016/j.mpaic.2020.08.002
8. Röder, P. V., Wu, B., Liu, Y., & Han, W. (2016). Pancreatic regulation of glucose homeostasis. Experimental & Molecular Medicine, 48, e219. https://doi.org/10.1038/emm.2016.6
9. Gerich, J. E. (1993). Control of glycaemia. Baillière’s Clinical Endocrinology and Metabolism, 7(3), 551–586.
10. Petersen, M. C., & Shulman, G. I. (2018). Mechanisms of insulin action and insulin resistance. Physiological Reviews, 98(4), 2133–2223. https://doi.org/10.1152/physrev.00063.2017
Síguenos en X: @el_homomedicus y @enarm_intensivo Síguenos en instagram: homomedicus y en Treads.net como: HomomedicusAprende administración paso a paso
ADMINISTRACION DESDE CERO
