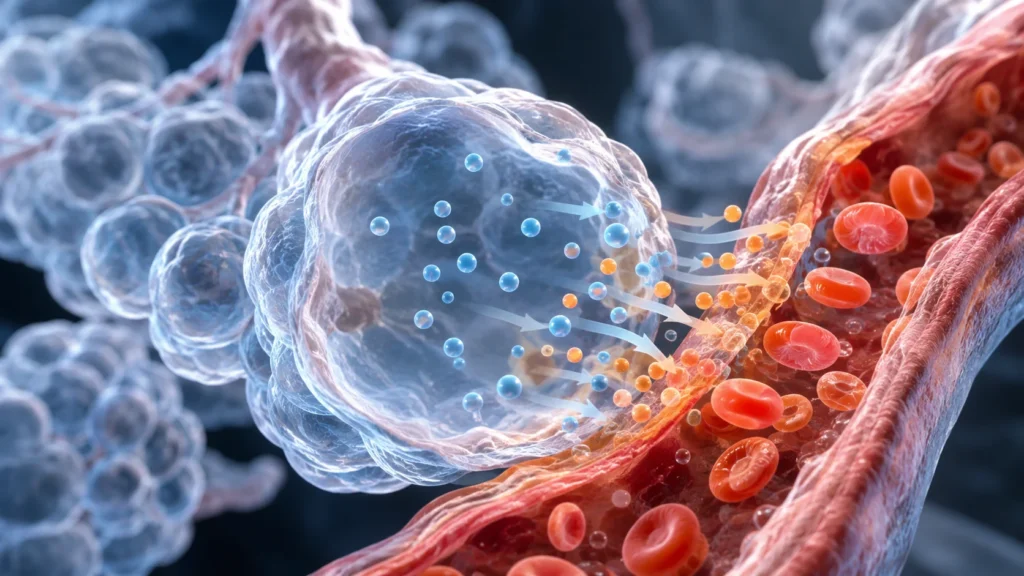

La difusión de gases es un proceso físico mediante el cual las moléculas gaseosas se desplazan espontáneamente desde una región donde su presión parcial es mayor hacia otra donde es menor, debido al movimiento térmico aleatorio de las moléculas. Este fenómeno constituye uno de los mecanismos fundamentales del intercambio gaseoso en el organismo, ya que permite el paso de oxígeno desde los alvéolos pulmonares hacia la sangre y el desplazamiento de dióxido de carbono desde la sangre hacia los alvéolos para posteriormente ser eliminado durante la espiración. La difusión es un proceso pasivo, lo que significa que no requiere un consumo directo de ATP, porque el movimiento neto de los gases está determinado por sus gradientes de presión parcial y por las propiedades físicas de las moléculas y de la membrana que atraviesan. Es importante distinguirla de la ventilación, que corresponde al desplazamiento del aire hacia el interior y el exterior de los pulmones, y de la perfusión, que representa el flujo sanguíneo a través de los capilares pulmonares. Estos tres procesos actúan de manera coordinada para garantizar el intercambio gaseoso y mantener una adecuada oxigenación de los tejidos.
El fundamento físico de la difusión de gases se explica mediante la primera ley de Fick, que establece que la cantidad de gas que atraviesa una membrana por unidad de tiempo depende directamente del área disponible para el intercambio, del coeficiente de difusión del gas y de la diferencia de presión parcial entre ambos lados de la membrana, mientras que es inversamente proporcional al grosor de la barrera. Matemáticamente, se expresa de la siguiente manera:

Esta relación permite comprender por qué el intercambio gaseoso pulmonar es altamente eficiente. Cuando aumenta la superficie disponible para la difusión, existe una mayor cantidad de espacio a través del cual pueden desplazarse las moléculas gaseosas. Por el contrario, cuando aumenta el grosor de la barrera alveolocapilar, se incrementa la distancia que deben recorrer las moléculas y disminuye la velocidad de transferencia. Asimismo, una mayor diferencia de presión parcial favorece el desplazamiento neto del gas, porque incrementa la fuerza impulsora de la difusión. Por tanto, la eficiencia del intercambio gaseoso depende tanto de las propiedades estructurales de la membrana como de las condiciones físicas que determinan el gradiente de presión.
Otro principio importante para comprender la difusión de gases es la ley de Dalton, que establece que la presión total de una mezcla gaseosa corresponde a la suma de las presiones parciales ejercidas individualmente por cada uno de sus componentes. La presión parcial representa la contribución de un gas específico a la presión total de la mezcla y depende de su proporción dentro de ella. En el sistema respiratorio, este principio permite comprender que el aire atmosférico contiene diferentes gases, principalmente nitrógeno y oxígeno, cada uno con su propia presión parcial. Cuando el aire ingresa en los pulmones, se humidifica y se mezcla con el gas que permanece en los alvéolos, por lo que su composición y sus presiones parciales cambian. En consecuencia, la presión parcial de oxígeno alveolar es menor que la del aire atmosférico seco, mientras que la presión parcial de dióxido de carbono es mayor debido a su incorporación continua desde la sangre pulmonar.
La ley de Henry también participa en el intercambio gaseoso, ya que establece que la cantidad de gas que se disuelve en un líquido depende directamente de su presión parcial y de su coeficiente de solubilidad. Esto significa que, cuando un gas entra en contacto con la sangre, una parte de sus moléculas se disuelve en el plasma y genera una presión parcial determinada. Esta presión parcial constituye el factor que impulsa la difusión entre el gas alveolar y la sangre. En el caso del oxígeno, la fracción disuelta en el plasma es relativamente pequeña, porque la mayor parte se transporta unida a la hemoglobina de los eritrocitos. Sin embargo, es precisamente el oxígeno disuelto el que determina la presión parcial sanguínea y establece el gradiente necesario para que continúe la difusión. Por esta razón, el contenido total de oxígeno en la sangre no debe confundirse con su presión parcial: el primero representa la cantidad total transportada, mientras que la segunda refleja la tensión del oxígeno disuelto.
El intercambio gaseoso pulmonar ocurre principalmente a través de la membrana alveolocapilar, una estructura especializada que separa el aire contenido en los alvéolos de la sangre que circula por los capilares pulmonares. Esta barrera está constituida por la capa de líquido que recubre el alvéolo y contiene surfactante, el epitelio alveolar, las membranas basales y el endotelio capilar. Su reducido grosor y su amplia superficie permiten que los gases atraviesen la barrera con gran rapidez. En condiciones fisiológicas, la superficie total disponible para el intercambio gaseoso es aproximadamente de 70 a 100 m², mientras que el grosor de la barrera es del orden de micrómetros o fracciones de micrómetro, dependiendo de la región y del método de medición. Esta organización anatómica disminuye la distancia de difusión y maximiza el contacto entre el aire alveolar y la sangre capilar, favoreciendo la transferencia eficiente de oxígeno y dióxido de carbono.
La difusión del oxígeno comienza cuando el aire inspirado alcanza los alvéolos y establece una presión parcial de oxígeno alveolar superior a la de la sangre venosa que llega a los capilares pulmonares. En condiciones habituales a nivel del mar, la presión parcial de oxígeno alveolar es aproximadamente de 100 mmHg, mientras que la sangre venosa mixta presenta una presión parcial cercana a 40 mmHg. Esta diferencia genera un gradiente de presión que impulsa el desplazamiento del oxígeno desde el interior alveolar hacia el plasma sanguíneo. Una vez que atraviesa el epitelio alveolar, las membranas basales y el endotelio capilar, el oxígeno se disuelve en el plasma y posteriormente ingresa en los eritrocitos, donde se une de manera reversible a la hemoglobina. La unión del oxígeno a la hemoglobina reduce la cantidad de oxígeno que permanece libre en solución y facilita que continúe su transferencia desde el alvéolo hacia la sangre. Cuando la presión parcial de oxígeno de la sangre capilar se aproxima a la presión parcial alveolar, el gradiente disminuye y la difusión neta se reduce hasta alcanzar el equilibrio.
La difusión del dióxido de carbono ocurre en sentido contrario. La sangre venosa que llega a los capilares pulmonares presenta una presión parcial de dióxido de carbono aproximadamente de 46 mmHg, mientras que la presión parcial alveolar es cercana a 40 mmHg. Esta diferencia favorece el desplazamiento del dióxido de carbono desde la sangre hacia el espacio alveolar. Aunque el gradiente de presión parcial del dióxido de carbono es considerablemente menor que el del oxígeno, su transferencia es eficiente porque el dióxido de carbono posee una solubilidad mucho mayor en los tejidos y líquidos biológicos. Su capacidad de difusión a través de la barrera alveolocapilar es aproximadamente 20 veces superior a la del oxígeno. Una vez que alcanza los alvéolos, el dióxido de carbono es eliminado mediante la espiración, lo que permite mantener estable su concentración en la sangre y contribuir al equilibrio ácido-base del organismo.
La difusión de gases también depende de las características moleculares de cada sustancia. El coeficiente de difusión está relacionado principalmente con la solubilidad del gas en el medio que atraviesa y con su peso molecular. En términos generales, los gases pequeños y altamente solubles presentan una mayor capacidad de difusión. Esta relación se expresa mediante la ley de Graham, según la cual, bajo condiciones comparables, la velocidad de difusión de un gas es inversamente proporcional a la raíz cuadrada de su peso molecular. Sin embargo, en los tejidos biológicos no basta con considerar únicamente el peso molecular, porque la solubilidad también modifica considerablemente la capacidad de atravesar una barrera. Por ello, el dióxido de carbono puede difundirse más rápidamente que el oxígeno a pesar de poseer un peso molecular superior, debido a su mayor solubilidad en los líquidos y tejidos que conforman la barrera alveolocapilar.
Un aspecto fundamental es que la difusión pulmonar no depende exclusivamente de las características de la membrana alveolocapilar, sino también del tiempo durante el cual la sangre permanece en contacto con el aire alveolar. En condiciones de reposo, un eritrocito tarda aproximadamente 0.75 segundos en atravesar un capilar pulmonar. Durante ese recorrido, el oxígeno normalmente alcanza el equilibrio entre la presión parcial alveolar y la presión parcial sanguínea durante el primer tercio del tránsito capilar, lo que significa que existe una reserva de tiempo para mantener el intercambio gaseoso incluso cuando aumenta el flujo sanguíneo durante el ejercicio. Cuando la velocidad de circulación aumenta considerablemente, el tiempo de contacto disminuye y puede comprometerse la transferencia de oxígeno si la capacidad de difusión está alterada.
Los gases pueden presentar un intercambio limitado por perfusión o limitado por difusión. Un gas está limitado por perfusión cuando alcanza rápidamente el equilibrio entre su presión parcial alveolar y la sanguínea, de manera que su transferencia adicional depende principalmente de que llegue más sangre a los capilares. El oxígeno presenta este comportamiento en condiciones pulmonares normales, porque alcanza el equilibrio antes de que la sangre abandone el capilar. En cambio, un gas está limitado por difusión cuando no logra alcanzar el equilibrio durante el tiempo disponible de contacto entre el alvéolo y la sangre. Este fenómeno puede presentarse cuando aumenta el grosor de la membrana alveolocapilar, disminuye la superficie disponible para el intercambio o se reduce considerablemente la capacidad de difusión del gas. El monóxido de carbono constituye un ejemplo clásico de intercambio limitado por difusión, debido a su elevada afinidad por la hemoglobina, que mantiene muy baja su presión parcial en la sangre capilar y conserva el gradiente de difusión.
La alteración de la difusión de gases puede observarse en diferentes enfermedades pulmonares. En la fibrosis pulmonar, el depósito excesivo de tejido conectivo incrementa el grosor de la barrera alveolocapilar y dificulta el paso del oxígeno hacia la sangre. En el enfisema pulmonar, la destrucción de las paredes alveolares disminuye la superficie disponible para el intercambio gaseoso y reduce la capacidad de difusión. En el edema pulmonar, la acumulación de líquido en el intersticio y en los espacios alveolares aumenta la distancia que deben atravesar las moléculas gaseosas. Estas alteraciones pueden producir hipoxemia, es decir, una disminución de la presión parcial de oxígeno en la sangre arterial. La repercusión clínica depende de la extensión del daño, de la gravedad de la alteración estructural y de la capacidad de compensación del sistema respiratorio.
Además, la difusión debe analizarse en relación con la ventilación y la perfusión pulmonar, porque una membrana estructuralmente conservada no garantiza por sí sola un intercambio gaseoso adecuado. Para que el oxígeno llegue a la sangre, los alvéolos deben recibir aire mediante la ventilación y, simultáneamente, deben recibir sangre mediante la circulación pulmonar. La relación ventilación-perfusión expresa la correspondencia entre ambos procesos. Cuando un alvéolo recibe aire, pero prácticamente no recibe sangre, existe ventilación desperdiciada o espacio muerto fisiológico. Por el contrario, cuando recibe sangre, pero no recibe suficiente aire, se produce un efecto de cortocircuito o shunt, porque la sangre atraviesa la circulación pulmonar sin oxigenarse adecuadamente. Por tanto, la eficiencia del intercambio gaseoso depende de la integración entre ventilación, difusión y perfusión.
La difusión de gases constituye un mecanismo pasivo indispensable para la respiración externa y el mantenimiento de la homeostasis del organismo. Su funcionamiento depende del gradiente de presión parcial, de la superficie disponible para el intercambio, del grosor de la membrana, de la solubilidad y del coeficiente de difusión de cada gas, así como del tiempo de contacto entre el aire alveolar y la sangre capilar. El oxígeno se desplaza desde los alvéolos hacia la sangre para incorporarse principalmente a la hemoglobina, mientras que el dióxido de carbono se desplaza en sentido inverso para ser eliminado mediante la espiración. La integridad de la membrana alveolocapilar y la adecuada coordinación entre ventilación y perfusión permiten que ambos gases alcancen un intercambio eficiente, indispensable para mantener el metabolismo celular, la producción de energía y el equilibrio ácido-base.
Fuente y lecturas recomendadas:
- Forster, R. E. (1987). Diffusion of gases across the alveolar membrane. Comprehensive Physiology, 71–88. https://doi.org/10.1002/j.2040-4603.1987.tb01129.x
- Manickavel, S. (2021). Pathophysiology of respiratory failure and physiology of gas exchange during ECMO. Indian Journal of Thoracic and Cardiovascular Surgery, 37(Suppl. 2), 203–209. https://doi.org/10.1007/s12055-020-01042-8
- Philibert, J. (2006). One and a half century of diffusion: Fick, Einstein, before and beyond. Diffusion Fundamentals, 4, 6.1–6.19.
- Roughton, F. J. W., & Forster, R. E. (1957). Relative importance of diffusion and chemical reaction rates in determining rate of exchange of gases in the human lung, with special reference to true diffusing capacity of pulmonary membrane and volume of blood in the lung capillaries. Journal of Applied Physiology, 11(2), 290–302. https://doi.org/10.1152/jappl.1957.11.2.290
- Wagner, P. D. (2015). The physiological basis of pulmonary gas exchange: Implications for clinical interpretation of arterial blood gases. European Respiratory Journal, 45(1), 227–243. https://doi.org/10.1183/09031936.00039214
- Krogh, M. (1915). The diffusion of gases through the lungs of man. The Journal of Physiology, 49, 271–300. https://doi.org/10.1113/jphysiol.1915.sp001710
Aprende administración paso a paso
ADMINISTRACION DESDE CERO