
La neurotransmisión y los receptores constituyen los mecanismos fundamentales mediante los cuales las neuronas se comunican entre sí y con otras células del organismo, como las musculares y las glandulares. La neurotransmisión es el proceso por el cual una célula nerviosa transmite información mediante señales eléctricas y químicas, mientras que los receptores son proteínas especializadas que reconocen esas señales y desencadenan respuestas celulares específicas. La interacción entre ambos mecanismos permite coordinar funciones como el movimiento, la sensibilidad, la memoria, el aprendizaje, las emociones, la regulación visceral y la actividad de los órganos.
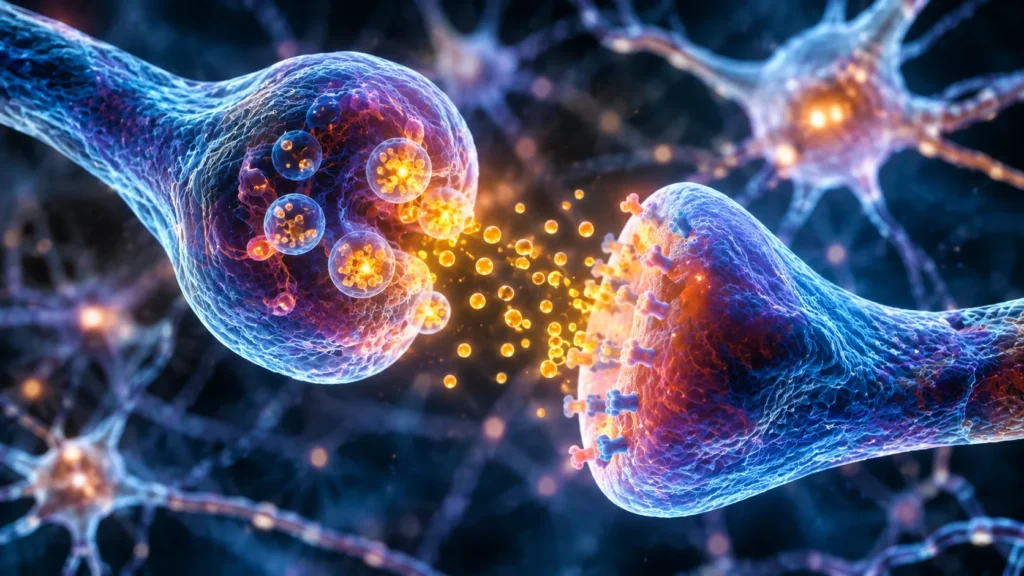
La comunicación neuronal comienza generalmente cuando un estímulo produce cambios en el potencial de membrana de una neurona. Si la despolarización alcanza el umbral necesario, se genera un potencial de acción que se propaga a lo largo del axón hasta llegar a sus terminales. En estas regiones se encuentran vesículas sinápticas que almacenan neurotransmisores, es decir, sustancias químicas capaces de transmitir información a otras células. La llegada del potencial de acción modifica el potencial eléctrico de la membrana presináptica y provoca la apertura de canales de calcio dependientes del voltaje. Como consecuencia, los iones de calcio ingresan al terminal nervioso y desencadenan la liberación del neurotransmisor mediante la fusión de las vesículas con la membrana celular.
La liberación de neurotransmisores depende de un mecanismo molecular de exocitosis regulado por proteínas especializadas. Entre ellas destacan las proteínas del complejo SNARE, que aproximan las membranas de las vesículas sinápticas y de la terminal presináptica hasta permitir su fusión. La sinaptobrevina, localizada en la vesícula, interactúa con la sintaxina y SNAP-25, presentes en la membrana celular. La sinaptotagmina funciona como sensor de calcio y participa en la activación de la fusión vesicular cuando aumenta la concentración de este ion en el terminal nervioso. Gracias a este mecanismo, la liberación del neurotransmisor ocurre de manera rápida y coordinada con la llegada del impulso nervioso.
Una vez liberados, los neurotransmisores atraviesan el espacio extracelular que separa a las células y alcanzan los receptores de la membrana postsináptica. En las sinapsis químicas clásicas, este espacio se denomina hendidura sináptica. La unión del neurotransmisor con su receptor transforma una señal química en una respuesta celular, que puede modificar el potencial de membrana, la actividad de enzimas, la expresión de genes o diferentes procesos metabólicos. La respuesta depende de la identidad del neurotransmisor, del tipo de receptor presente, de su localización y de las características fisiológicas de la célula que recibe la señal.
La transmisión química no es la única forma de comunicación entre neuronas. En la sinapsis eléctrica, las células se conectan mediante uniones comunicantes o uniones gap, formadas por canales que permiten el paso directo de iones y pequeñas moléculas entre células vecinas. Esta comunicación facilita la transmisión rápida de cambios eléctricos y puede sincronizar la actividad de grupos neuronales. Aunque las sinapsis eléctricas son menos frecuentes que las químicas en muchas regiones del sistema nervioso, cumplen funciones importantes en determinados circuitos donde se requiere coordinación temporal de la actividad neuronal.
Los receptores de neurotransmisores se clasifican principalmente en ionotrópicos y metabotrópicos, de acuerdo con el mecanismo mediante el cual convierten la unión química en una respuesta celular. Esta clasificación es fundamental porque determina la velocidad, la duración y la naturaleza de la respuesta neuronal.
Los receptores ionotrópicos son proteínas de membrana que funcionan directamente como canales iónicos regulados por ligandos. Cuando un neurotransmisor se une a ellos, el canal modifica su conformación y permite el paso selectivo de iones, como sodio, potasio, calcio o cloruro. El movimiento de estos iones modifica el potencial eléctrico de la membrana postsináptica y puede aumentar o disminuir la probabilidad de que la neurona genere un potencial de acción. Debido a que el receptor y el canal forman parte del mismo complejo proteico, la respuesta suele ser rápida y puede comenzar en milisegundos.
Entre los principales receptores ionotrópicos se encuentran los receptores de glutamato de tipo AMPA, NMDA y kainato, que participan en la transmisión excitadora del sistema nervioso central. Los receptores AMPA permiten principalmente el flujo de sodio y potasio, por lo que producen despolarizaciones rápidas. Los receptores NMDA presentan una regulación más compleja: además de requerir la unión de glutamato y un coagonista, su canal se encuentra bloqueado por magnesio cuando la membrana está en condiciones de reposo. La despolarización previa favorece la salida de este bloqueo y permite la entrada de calcio y otros iones. Por esta razón, los receptores NMDA funcionan como detectores de coincidencia entre la actividad presináptica y la despolarización postsináptica, y participan de manera importante en la plasticidad sináptica, el aprendizaje y la memoria.
También existen receptores ionotrópicos inhibidores, como los receptores GABA-A y los receptores de glicina. Estos receptores permiten principalmente el movimiento de iones cloruro a través de la membrana. Su activación suele producir una inhibición de la actividad neuronal, aunque el efecto concreto depende del gradiente electroquímico del cloruro y del potencial de membrana de la célula. En las neuronas maduras, la activación de estos receptores generalmente genera hiperpolarización o inhibición por derivación, lo que reduce la probabilidad de que se produzca un potencial de acción.
Los receptores metabotrópicos, en cambio, no constituyen directamente canales iónicos. Son proteínas de membrana que, después de unirse al neurotransmisor, activan mecanismos de señalización intracelular, frecuentemente mediante proteínas G. Estas proteínas regulan enzimas, canales iónicos y sistemas de segundos mensajeros, como el adenosín monofosfato cíclico, el inositol trifosfato y el diacilglicerol. A través de estas vías, los receptores metabotrópicos pueden modificar la excitabilidad neuronal, el metabolismo celular, la liberación de neurotransmisores y la expresión de determinados genes. Sus respuestas suelen desarrollarse más lentamente que las de los receptores ionotrópicos, pero pueden mantenerse durante períodos más prolongados.
Un ejemplo de receptores metabotrópicos son los receptores muscarínicos de acetilcolina, los receptores de dopamina, serotonina y noradrenalina, así como los receptores metabotrópicos de glutamato. Estos últimos permiten que el glutamato no solamente produzca respuestas eléctricas rápidas, sino que también regule la actividad de los circuitos neuronales mediante mecanismos intracelulares. Por ello, un mismo neurotransmisor puede generar respuestas diferentes dependiendo del subtipo de receptor al que se una.
La respuesta postsináptica puede ser excitadora o inhibidora. Una respuesta excitadora aumenta la probabilidad de que la neurona alcance el umbral necesario para generar un potencial de acción. Generalmente se produce cuando la apertura de determinados canales permite la entrada neta de cargas positivas, lo que ocasiona una despolarización de la membrana. Por el contrario, una respuesta inhibidora disminuye la probabilidad de generar un potencial de acción, ya sea mediante la hiperpolarización de la membrana o mediante mecanismos que reducen la eficacia de las corrientes excitadoras. Es importante señalar que el efecto de un neurotransmisor no depende exclusivamente de su identidad química, sino principalmente del receptor activado y de las condiciones electroquímicas de la célula postsináptica.
La integración de estas respuestas ocurre mediante la sumación temporal y espacial. La sumación temporal se produce cuando una misma terminal presináptica libera neurotransmisores repetidamente en intervalos breves, de modo que las respuestas postsinápticas se superponen. La sumación espacial ocurre cuando varias terminales nerviosas activan simultáneamente diferentes regiones de una misma neurona. Las señales excitadoras e inhibidoras se integran en la membrana celular, especialmente en la región inicial del axón, donde se determina si la despolarización alcanza el umbral necesario para generar un nuevo potencial de acción. Este mecanismo permite que una neurona procese información procedente de numerosas conexiones y produzca una respuesta coordinada.
Entre los principales neurotransmisores se encuentran el glutamato, el ácido gamma-aminobutírico, la glicina, la acetilcolina, la dopamina, la serotonina, la noradrenalina, la histamina y diferentes neuropéptidos. Cada uno participa en circuitos y funciones particulares, y su efecto depende de los receptores que expresa la célula receptora.
El glutamato es el principal neurotransmisor excitador del sistema nervioso central. Interviene en la transmisión de información entre neuronas y participa en procesos de plasticidad sináptica, aprendizaje y memoria. Sus acciones se producen mediante receptores ionotrópicos y metabotrópicos, que permiten regular tanto las respuestas eléctricas rápidas como los mecanismos intracelulares de mayor duración.
El ácido gamma-aminobutírico es el principal neurotransmisor inhibidor del encéfalo. Reduce la excitabilidad neuronal mediante receptores GABA-A, que son ionotrópicos, y receptores GABA-B, que son metabotrópicos. Los primeros regulan principalmente la permeabilidad al cloruro, mientras que los segundos activan proteínas G que modifican la actividad de canales iónicos y otras vías intracelulares. La glicina también cumple una función inhibidora importante, especialmente en la médula espinal y el tronco encefálico, donde participa en la regulación de los reflejos motores y de la actividad de circuitos sensitivos.
La acetilcolina interviene en la contracción muscular, la transmisión en los ganglios del sistema nervioso autónomo y diferentes procesos del sistema nervioso central. Actúa mediante receptores nicotínicos, que son ionotrópicos, y receptores muscarínicos, que son metabotrópicos. Los receptores nicotínicos permiten el paso de cationes y producen respuestas eléctricas rápidas, mientras que los muscarínicos regulan la actividad celular mediante proteínas G. Esta diversidad explica por qué la acetilcolina puede producir efectos diferentes según el tejido y el subtipo de receptor presente.
La dopamina participa en la regulación del movimiento, la motivación, el aprendizaje por recompensa y determinados procesos cognitivos. Sus receptores son metabotrópicos y se agrupan en familias que producen efectos intracelulares diferentes. La serotonina interviene en la regulación del estado de ánimo, el sueño, el apetito, la percepción del dolor y otras funciones. La mayoría de sus receptores son metabotrópicos, aunque el receptor 5-HT3 constituye una excepción porque es ionotrópico. La noradrenalina participa en la atención, la respuesta al estrés y la regulación de la actividad del sistema nervioso autónomo. Sus efectos dependen de receptores adrenérgicos alfa y beta, todos ellos metabotrópicos.
Los neuropéptidos, como las endorfinas, las encefalinas y la sustancia P, también funcionan como mensajeros químicos. Generalmente actúan mediante receptores metabotrópicos y producen respuestas moduladoras que pueden modificar la intensidad y la duración de la transmisión neuronal. A diferencia de muchos neurotransmisores de molécula pequeña, los neuropéptidos suelen almacenarse en vesículas de núcleo denso y pueden liberarse en condiciones de actividad neuronal sostenida o intensa. Sus efectos pueden extenderse más allá de una sinapsis individual y modificar la actividad de circuitos completos.
Una característica importante de la neurotransmisión es que la señal debe terminar de manera controlada para evitar una estimulación continua de los receptores. La eliminación del neurotransmisor ocurre principalmente mediante tres mecanismos: recaptación, degradación enzimática y difusión fuera de la región sináptica. La recaptación consiste en transportar el neurotransmisor desde el espacio extracelular hacia la terminal presináptica o hacia células gliales. La degradación enzimática transforma determinadas moléculas en productos que ya no pueden activar sus receptores. La difusión permite que el neurotransmisor se aleje de la región donde fue liberado y disminuya su concentración local.
La recaptación es especialmente importante para neurotransmisores como la dopamina, la serotonina, la noradrenalina, el glutamato y el ácido gamma-aminobutírico. En el caso de la acetilcolina, la terminación de la señal depende principalmente de su degradación por la enzima acetilcolinesterasa, que la transforma en colina y acetato. La colina puede ser transportada nuevamente al terminal presináptico y utilizarse para sintetizar acetilcolina. En el caso del glutamato, las células gliales desempeñan una función esencial al captarlo y participar en su conversión metabólica para favorecer su reutilización.
La actividad de los receptores también puede regularse mediante mecanismos presinápticos y postsinápticos. Los autorreceptores son receptores localizados en la neurona que libera el neurotransmisor y reconocen la misma sustancia que esa neurona secreta. Su activación permite detectar la concentración del neurotransmisor y regular procesos como su síntesis y liberación. Los heterorreceptores, por su parte, responden a neurotransmisores diferentes de los liberados por la propia neurona y permiten que otras señales químicas modifiquen su actividad. Estos mecanismos contribuyen a mantener el equilibrio de la comunicación neuronal y evitan respuestas excesivas o insuficientes.
Los receptores no permanecen estáticos en la membrana celular. Pueden incorporarse, retirarse, reciclarse o degradarse mediante procesos de tráfico intracelular. Estos cambios modifican la cantidad de receptores disponibles para reconocer un neurotransmisor y, por tanto, la intensidad de la respuesta postsináptica. Cuando una sinapsis aumenta o disminuye su eficacia como consecuencia de la actividad neuronal, se produce un fenómeno denominado plasticidad sináptica. La potenciación a largo plazo y la depresión a largo plazo son dos formas de plasticidad que modifican de manera persistente la eficacia de las conexiones neuronales. Estos procesos son fundamentales para la adaptación de los circuitos nerviosos y participan en los mecanismos celulares relacionados con el aprendizaje y la memoria.
La neurotransmisión también puede producirse mediante mecanismos que no dependen exclusivamente de contactos sinápticos directos. En la denominada transmisión por volumen, determinados neurotransmisores se liberan y difunden por el espacio extracelular hasta alcanzar receptores situados a cierta distancia de la célula que los liberó. Este mecanismo es particularmente relevante para sistemas neuromoduladores que utilizan dopamina, noradrenalina, serotonina y neuropéptidos. A diferencia de la transmisión sináptica clásica, que suele ser rápida y espacialmente precisa, la transmisión por volumen puede actuar sobre poblaciones celulares más amplias y producir efectos moduladores prolongados.
La neurotransmisión y los receptores constituyen un sistema de comunicación altamente especializado que permite transformar señales eléctricas en respuestas químicas y nuevamente en cambios eléctricos o metabólicos. La liberación regulada de neurotransmisores, el reconocimiento molecular por receptores específicos, la activación de canales iónicos y vías intracelulares, y la eliminación controlada de los mensajeros químicos permiten que las neuronas transmitan, integren y modifiquen información. La diversidad de neurotransmisores y receptores proporciona al sistema nervioso la capacidad de generar respuestas rápidas, inhibir determinadas actividades, modular circuitos y modificar la eficacia de las conexiones neuronales de acuerdo con las necesidades fisiológicas del organismo.
Fuente y lecturas recomendadas:
1. Özçete, Ö. D., Banerjee, A., & Kaeser, P. S. (2024). Mechanisms of neuromodulatory volume transmission. Molecular Psychiatry. https://doi.org/10.1038/s41380-024-02608-3
2. Rizo, J. (2022). Molecular mechanisms underlying neurotransmitter release. Annual Review of Biophysics, 51, 377–408. https://doi.org/10.1146/annurev-biophys-111821-104732
3. Rizo, J. (2022). Molecular mechanisms underlying neurotransmitter release. Annual Review of Biophysics, 51, 377–408. https://doi.org/10.1146/annurev-biophys-111821-104732
4. Smart, T. G., & Paoletti, P. (2012). Synaptic neurotransmitter-gated receptors. Cold Spring Harbor Perspectives in Biology, 4(3), a009662. https://doi.org/10.1101/cshperspect.a009662
5. Pereda, A. E. (2014). Electrical synapses and their functional interactions with chemical synapses. Nature Reviews Neuroscience, 15(4), 250–263. https://doi.org/10.1038/nrn3708
6. Reiner, A., & Levitz, J. (2018). Glutamatergic signaling in the central nervous system: Ionotropic and metabotropic receptors in concert. Neuron, 98(6), 1080–1098. https://doi.org/10.1016/j.neuron.2018.05.018
7. Pressey, J. C., de Saint-Rome, M., Raveendran, V. A., & Woodin, M. A. (2023). Chloride transporters controlling neuronal excitability. Physiological Reviews, 103(2). https://doi.org/10.1152/physrev.00025.2021
8. Lovinger, D. M., Mateo, Y., Johnson, K. A., Engi, S. A., Antonazzo, M., & Cheer, J. F. (2022). Local modulation by presynaptic receptors controls neuronal communication and behaviour. Nature Reviews Neuroscience, 23, 191–203. https://doi.org/10.1038/s41583-022-00561-0
9. Dutertre, S., Becker, C.-M., & Betz, H. (2012). Inhibitory glycine receptors: An update. Journal of Biological Chemistry, 287(48), 40216–40223. https://doi.org/10.1074/jbc.R112.408229
10. Engelman, H. S., & MacDermott, A. B. (2004). Presynaptic ionotropic receptors and control of transmitter release. Nature Reviews Neuroscience, 5, 135–145. https://doi.org/10.1038/nrn1297
11. Purves, D., Augustine, G. J., Fitzpatrick, D., Hall, W. C., LaMantia, A.-S., McNamara, J. O., & White, L. E. (Eds.). (2001). Neuroscience (2nd ed.). Sinauer Associates.
12. MacDermott, A. B., Role, L. W., & Siegelbaum, S. A. (1999). Presynaptic ionotropic receptors and the control of transmitter release. Annual Review of Neuroscience, 22, 443–485. https://doi.org/10.1146/annurev.neuro.22.1.443
13. Kittler, J. T. (2001). Neurotransmitter receptor trafficking and the regulation of synaptic strength. Traffic, 2(7), 437–448. https://doi.org/10.1034/j.1600-0854.2001.20702.x
Síguenos en X: @el_homomedicus y @enarm_intensivo Síguenos en instagram: homomedicus y en Treads.net como: HomomedicusAprende administración paso a paso
ADMINISTRACION DESDE CERO